Les kinésines sont des protéines motrices associées aux microtubules qui assurent notamment le transport intracellulaire et participent à la dynamique des microtubules, à la mitose, à la cytokinèse et aux fonctions ciliaires.
2. La plupart des kinésines motrices se déplacent vers l'extrémité (+) des microtubules et assurent ainsi fréquemment un transport centrifuge ou antérograde.
Cette directionnalité n'est cependant pas une propriété universelle de la superfamille.
Les kinésines-13, fonctionnent principalement comme régulateurs de la dynamique des microtubules plutôt que comme moteurs assurant le transport d'un cargo sur de longues distances.
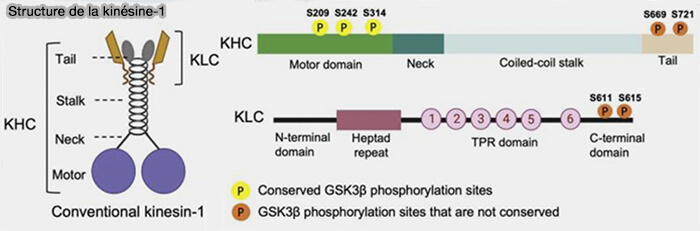
2. Le cou (neck), immédiatement adjacent au domaine moteur, qui comprend :
le neck linker, très court, dont le changement de conformationnel joue un rôle essentiel dans le couplage entre l'hydrolyse de l'ATP et le déplacement ( cycle mécanochimique),
la région neck coil (CCO), qui forme un coiled-coil (superhélice) entre les deux chaînes lourdes et contribue à leur dimérisation.
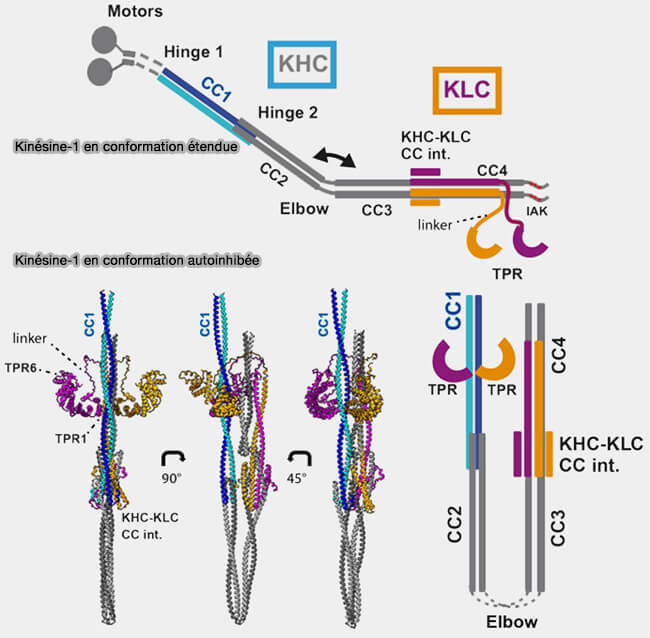
3. La tige, formée de plusieurs domaines coiled-coil (CC1 à CC4), contribue à la dimérisation des deux chaînes lourdes.
4. La queue (tail) C-terminale est impliquée dans la régulation du moteur et l'association avec les chaînes légères et les cargos.
Elle contient notamment le motif IAK (Isoleucine-Alanine-Lysine), impliqué dans l'autoinhibition de la kinésine-1.
une région N-terminale contenant des répétitions heptadiques, i.e. des motifs de sept résidus favorisant la formation d'une structure coiled-coil (superhélice) et permettant l'association de la chaîne légère avec la région CC3 de la chaîne lourde et contribue ainsi à la stabilité du complexe kinésine-1,
Kinésine 1 en conformation étendue et autoinhibée
(Figure : vetopsy.fr d'après Shukla et coll)
2. Les chaînes légères :
BORC, Arl8b, SKIP et kinésine
(Figure : vetopsy.fr d'après Keren-Kaplan et coll)
participent à la sélection et à la liaison des cargos par leur domaine TPR, directement ou par l'intermédiaire de protéines adaptatrices comme les JIP (JNK-interacting proteins), la calsynténine-1 et SKIP/PLEKHM2,
contribuent à la régulation de l'activité de la kinésine-1, notamment à son autoinhibition et à son activation lors du recrutement des cargos.
Cycle mécanochimique des kinésines
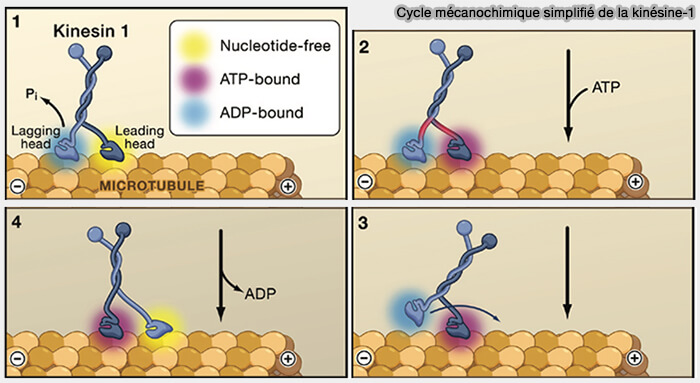
Dans la kinésine-1, les deux domaines moteurs identiques fonctionnent de manière coordonnée.
La kinésine-1 est un moteur processif, propriété qui permet d'effectuer plusieurs pas successifs le long d'un microtubule avant de s'en dissocier.
Remarque : la processivité et les paramètres mécanochimiques varient cependant fortement selon les familles de kinésines et peuvent être modulés par la dimérisation, les protéines associées, les cargos et les propriétés du microtubule.
La liaison de l'ATP à une tête fixée au microtubule favorise l'arrimage de son neck linker et le déplacement de l'autre tête vers le site de liaison suivant.
Les deux têtes alternent ainsi leur position selon un mécanisme généralement décrit comme une marche hand-over-hand.
Chaque pas de la kinésine produit un déplacement d'environ 8 nm, correspondant à l'espacement longitudinal des dimères d'α/β-tubuline le long d'un protofilament.
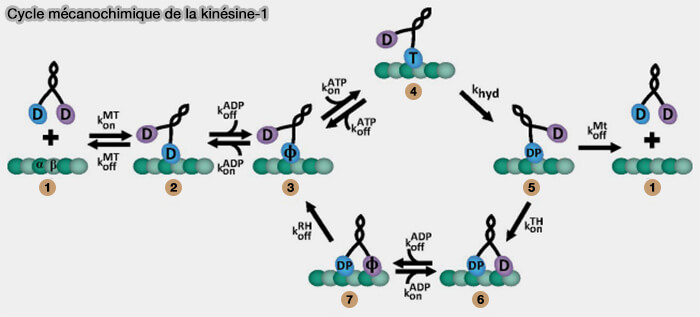
1. Les deux têtes motrices de la kinésine libre contiennent de l'ADP (D) et ne sont pas liées au microtubule.
2. À la suite d'une rencontre avec le microtubule, l'une des deux têtes motrices contenant de l'ADP (D) se fixe au microtubule, tandis que l'autre tête, également liée à l'ADP (D), reste libre en position arrière.
La fixation de la tête motrice au microtubule :
met en jeu l'interface de liaison à la tubuline du domaine moteur, notamment la boucle L11 et l'hélice α4,
provoque une réorganisation conformationnelle du domaine moteur qui se propage de l'interface de liaison au microtubule jusqu'au site de liaison du nucléotide,
modifie notamment les régions switch I et switch II impliquées dans le couplage entre la liaison au microtubule et l'état du site nucléotidique.
3. Ces changements conformationnels déstabilisent la liaison du Mg-ADP et favorisent la libération de l'ADP (D) par la tête fixée au microtubule, la tête motrice passe alors à l'état sans nucléotide (Φ), caractérisé par :
une forte affinité pour le microtubule,
un neck linker mobile et non complètement arrimé au domaine moteur.
Cycle mécanochimique de la kinésine-1
(Figure : vetopsy.fr d'après Zaniewski et coll)
4. Un ATP (T) se fixe dans le site nucléotidique de la tête liée au microtubule et provoque une réorganisation des régions switch du domaine moteur.
Cette réorganisation se transmet à la zone d'insertion du neck linker et amorce son arrimage contre la surface du domaine moteur.
L'arrimage du neck linker de la tête fixée au microtubule réoriente vers l'extrémité (+) la connexion de cette tête avec la région de dimérisation des deux chaînes lourdes.
La seconde tête, reliée à la région de dimérisation des deux chaînes lourdes par son propre neck linker, reste libre et liée à l'ADP (D).
Sa mobilité est orientée préférentiellement vers l'avant et elle se déplace par diffusion jusqu'à proximité du site de liaison suivant sur le microtubule.
Remarque : à cette étape, la tête liée au microtubule se trouve dans un état ADP·Pi (DP) de plus faible affinité.
Si elle se détache avant que la tête libre ne se fixe au site suivant, les deux têtes se retrouvent libres et la kinésine revient à l'état 1.
Si la tête libre se fixe avant ce détachement, le moteur passe à l'étape 6 et poursuit son déplacement processif.
6. La tête libre située en avant se fixe sur le site suivant du microtubule et les deux têtes sont alors transitoirement liées au microtubule mais dans deux états nucléotidiques différents.
La nouvelle tête avant vient de se fixer et contient encore de l'ADP (D).
L'ancienne tête, maintenant située en arrière, contient de l'ADP·Pi (DP).
7. La fixation de la nouvelle tête avant au microtubule entraîne deux changements qui rétablissent un état équivalent à celui de l'étape 3.
La nouvelle tête avant libère son ADP, passe à l'état sans nucléotide (Φ) et acquiert une forte affinité pour le microtubule.
La tête arrière libère Pi et se détache du microtubule, ramenant la kinésine dans un état équivalent à celui de l'étape 3, mais avancée d'environ 8 nm.
La kinésine-1 présente une marche relativement régulière vers l'extrémité (+) du microtubule, avec des pas d'environ 8 nm.
La dynéine cytoplasmique présente un déplacement plus irrégulier vers l'extrémité (-), avec des pas de taille variable et des déplacements transitoires en sens inverse.
La superfamille des kinésines est classiquement divisée en 14 familles, kinésine-1 à kinésine-14, établies principalement à partir des relations phylogénétiques entre leurs domaines moteurs.
Les différentes familles présentent des architectures, des propriétés mécanochimiques et des fonctions cellulaires très diverses :
Plusieurs familles de kinésines, notamment des membres des kinésines-1, -2 et -3, participent au transport antérograde des vésicules et des compartiments endosomaux et lysosomaux.
Un même compartiment peut recruter plusieurs kinésines appartenant à des familles différentes, qui peuvent intervenir de manière coordonnée dans son transport, ce qui rend particulièrement complexe l'attribution d'un cargo ou d'un compartiment à une kinésine donnée ( tableau).
1. La kinésine-1 (KIF5) comprend KIF5A, KIF5B et KIF5C.
Chez les Mammifères, KIF5B est largement exprimée, tandis que KIF5A et KIF5C sont particulièrement exprimées dans le système nerveux.
Kinésines et trafic des lysosomes
(Figure : vetopsy.fr d'après Guardia et coll)
a. La kinésine-1 est un moteur dirigé vers l'extrémité (+) des microtubules qui assure le transport de nombreux cargos membranaires et non membranaires, notamment :
2. Les kinésines-2 (KIF3) comprennent notamment KIF3A, KIF3B, KIF3C et KIF17.
KIF3A s'associe à KIF3B ou KIF3C pour former des moteurs hétérodimériques qui peuvent s'associer à la protéine accessoire non motrice KAP (kinesin-associated protein, KIFAP3), impliquée notamment dans l'interaction avec les cargos, pour constituer des complexes hétérotrimériques.
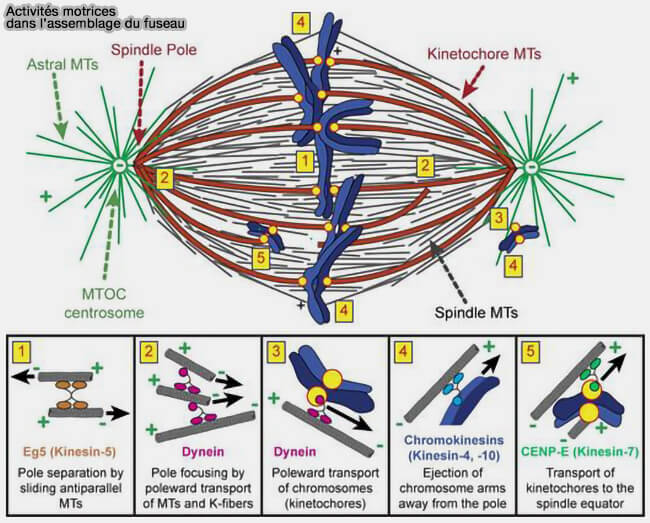
De nombreuses kinésines participent à l'assemblage, à l'organisation et au fonctionnement du fuseau mitotique.
Les principales kinésines mitotiques sont présentées dans un chapitre spécifique de la page consacrée aux moteurs mitotiques, où elles sont regroupées dans deux tableaux selon la phase de la mitose au cours de laquelle elles interviennent et selon les structures mitotiques auxquelles elles sont associées.
KIF4B est un paralogue très proche de KIF4A, mais ses fonctions cellulaires propres restent beaucoup moins bien caractérisées
b. KIF7 intervient principalement dans la voie de signalisation Hedgehog au niveau du cil primaire, où elle participe à l'organisation de l'extrémité distale des microtubules ciliaires et à la régulation de la signalisation.
b. KIF20B intervient davantage dans l'organisation et la maturation du midbody, notamment dans l'organisation serrée de ses microtubules, et dans le contrôle de l'abscission.
7. Les kinésines-14, notamment KIFC1/HSET chez l'Homme, constituent une exception importante à la directionnalité habituelle des kinésines, leur domaine moteur C-terminal assure un déplacement vers l'extrémité (-) des microtubules.
Contrairement aux kinésines de transport processives, elles utilisent leur domaine moteur ATPase surtout pour déstabiliser les microtubules, agir à leurs extrémités et favoriser leur dépolymérisation.
KIF2C/MCAK intervient dans la régulation de la dynamique des microtubules au cours de la mitose.
KIF24 intervient notamment dans le contrôle de la dynamique des microtubules du centriole et du cil primaire.
Autres familles de kinésines
Certaines familles de kinésines assurent des fonctions plus spécialisées et ne s'intègrent pas directement dans les grands groupes fonctionnels précédents.
1. Les kinésines-9, comprenant notamment KIF6 et KIF9, sont principalement associées aux cils et aux flagelles, KIF9 participant notamment à la régulation de leur motilité.
2. Les kinésines-11, comprenant KIF26A et KIF26B, sont des kinésines atypiques non motrices qui interviennent principalement dans la signalisation et l'organisation cellulaire.
KIF26A participe notamment à la régulation de la migration et de l'adhérence cellulaires ainsi qu'à certaines voies de signalisation impliquées dans le développement.
KIF26B intervient notamment dans l'organisation du cytosquelette, l'adhérence et la migration cellulaires et joue un rôle important au cours du développement embryonnaire, en particulier dans le développement rénal.


 cycle mécanochimique),