Les myosines sont des protéines motrices qui utilisent les microfilaments d'actine comme rails pour produire des forces et des mouvements cellulaires grâce à l'hydrolyse de l'ATP.
à l'organisation et au remodelage des réseaux d'actine, certaines myosines II pouvant notamment contribuer à leur désassemblage (désassemblage des réseaux d'actine).
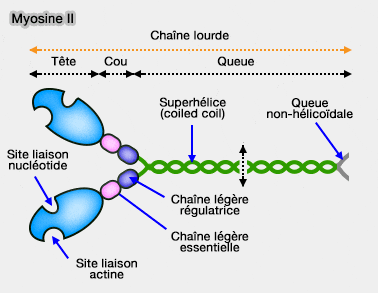
La ou les deux chaînes lourdes (HC ou Heavy Chain) forment l'armature (semblable à un club de golf) et comprend trois grandes régions.
Structure générale des HC
Structure de la myosine II
(Figure : vetopsy.fr)
1. La tête est formée par la région N-terminale de la chaîne lourde et contient un domaine moteur relativement conservé qui assure la liaison aux microfilaments d'actine et l'hydrolyse de l'ATP, ces deux activités étant étroitement couplées.
2. Le cou, qui relie la tête à la queue, constitue le bras de levier qui amplifie les changements conformationnels du domaine moteur.
Sa longueur et son organisation varient selon les classes de myosines, notamment par le nombre de motifs IQ, qui constituent des sites de liaison à la calmoduline ou à d'autres chaînes légères apparentées, et contribuent à déterminer l'amplitude du déplacement produit par le moteur.
3. La queue (tige ou axe) formée par la région C-terminale de la chaîne lourde est la partie la plus variable selon les classes de myosines et détermine une grande partie de leurs interactions et de leurs fonctions spécifiques.
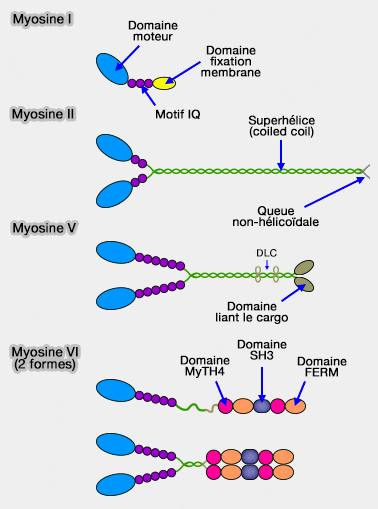
Domaines de la queue
Les domaines et motifs incorporés dans la queue sont très divers.
1. Les régions coiled-coil participent à la dimérisation de certaines myosines, comme les myosines II et V, et tandis que la dimérisation des myosines VII et X dépend davantage de leur état d'activation et de leurs interactions avec différents partenaires.
2. Plusieurs domaines participent aux interactions protéine-protéine.
a. Le domaine MyTH4 (Myosin Tail Homology 4), présent notamment dans les myosines VII, X et XV, est associé à un domaine FERM situé immédiatement en aval.
Les deux domaines interagissent étroitement et constituent un supramodule MyTH4-FERM impliqué dans la reconnaissance de différents partenaires.
Le domaine MyTH4 participe notamment aux interactions avec les microtubules, tandis que le domaine FERM contribue à la liaison de différentes protéines partenaires et à la régulation de certaines de ces myosines.
c. Le domaine SH3 est présent dans les myosines I à longue queue Myo1E et Myo1F et dans les myosines XV.
3. Certains domaines participent à la régulation de voies de signalisation.
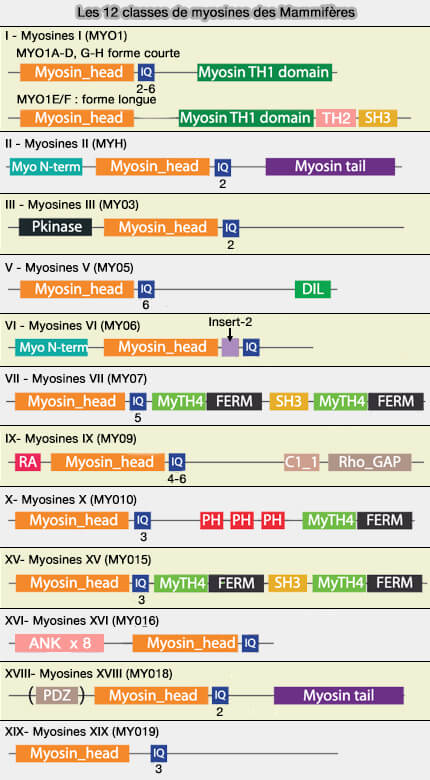
Structure de quelques myosines
(Figure : vetopsy.fr d'après Krendel)
4. Certains domaines participent aux interactions avec les lipides membranaires, comme par les domaines PH (Pleckstrin Homology), présent en 3 exemplaires dans la myosine X.
Chaînes légères (LC)
1. Les chaînes légères (LC ou Light Chains) se lient aux motifs IQ situés dans le cou de nombreuses myosines et contribuent à stabiliser le bras de levier et à moduler les propriétés du moteur.
Leur nature et leur nombre varient selon les classes de myosines.
Remarque : certaines myosines possèdent des régions de cou atypiques dans lesquelles les motifs IQ sont complétés par d'autres éléments structuraux participant au bras de levier ( Myo6).
2. Selon les classes de myosines, les protéines associées au cou comprennent notamment :
différentes protéines apparentées à la calmoduline, appartenant à la superfamille des protéines à mains EF (EF hand).
Classification des myosines
Les myosines forment une superfamille très diversifiée dont les membres peuvent être classés selon deux approches complémentaires :
leur parenté phylogénétique,
leurs propriétés mécanochimiques.
La classification des myosines est complexe et continue d'évoluer avec l'identification de nouvelles myosines et l'analyse d'un nombre croissant de génomes.
1. La classification des myosines en classes repose principalement sur les relations phylogénétiques établies à partir de la séquence conservée de leur domaine moteur.
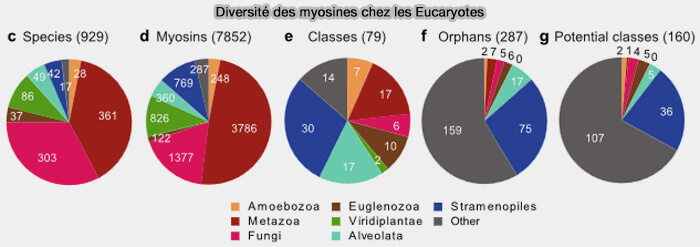
a. À l'échelle des eucaryotes, le nombre de classes reconnues varie selon les auteurs, les organismes étudiés et les méthodes phylogénétiques utilisées.
Diversité des myosines chez les eucaryotes (Figure : vetopsy.fr d'après Kollmar et Mühlhausen)
b. Chez les Mammifères, la classification est beaucoup plus stable et les myosines sont réparties en 12 classes : I, II, III, V, VI, VII, IX, X, XV, XVI, XVIII et XIX ( diversités des myosines).
Les différentes classes de myosines se distinguent par leurs propriétés structurales et mécanochimiques, leurs partenaires et leurs fonctions cellulaires.
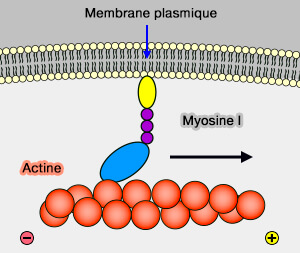
Myosine I
(Figure : vetopsy.fr)
1. Les myosines I, comprenant huit membres chez les mammifères, Myo1a à Myo1h, sont notamment associées aux membranes et participent à :
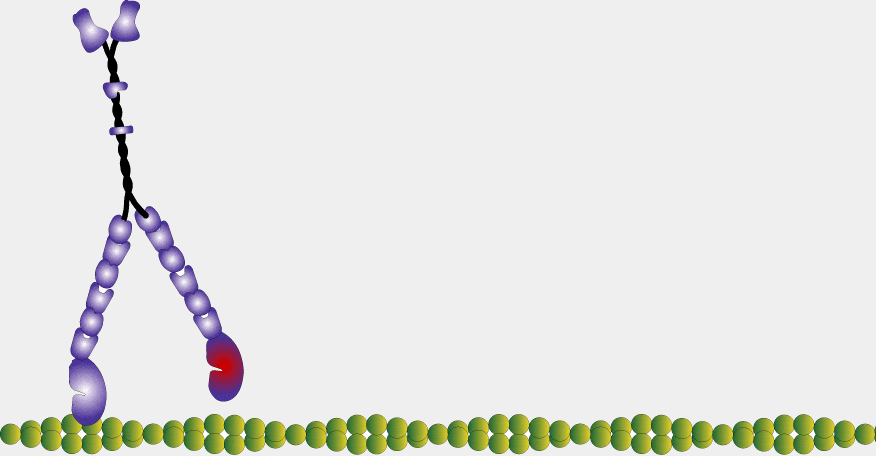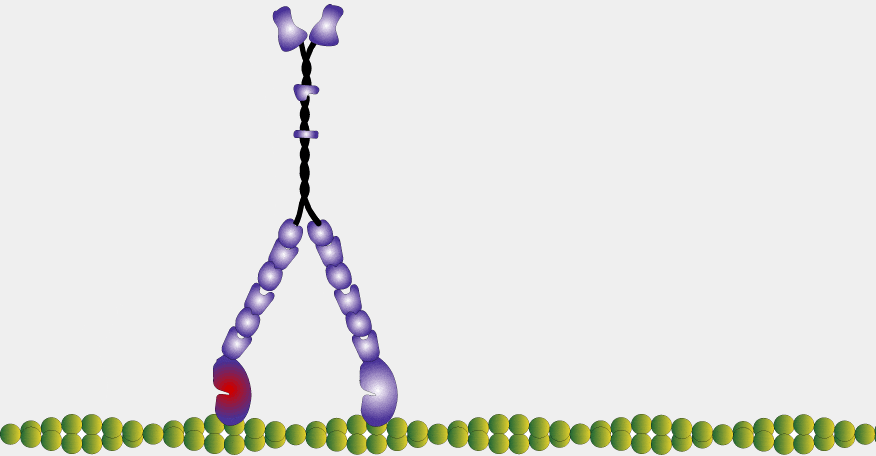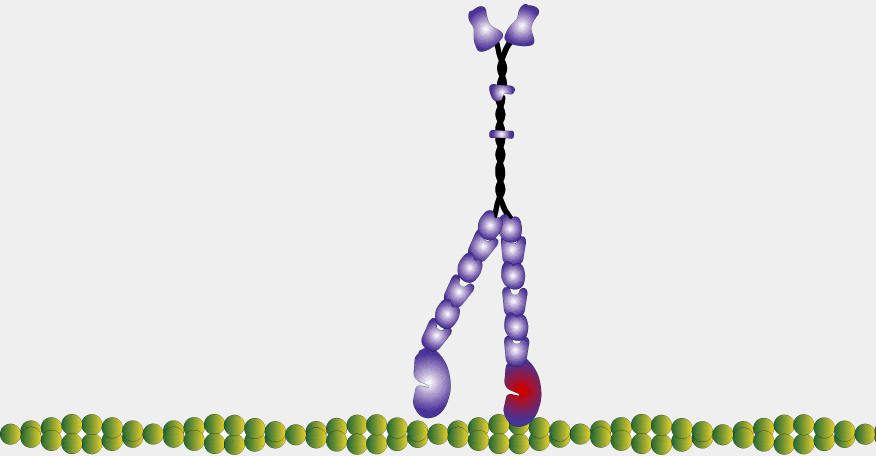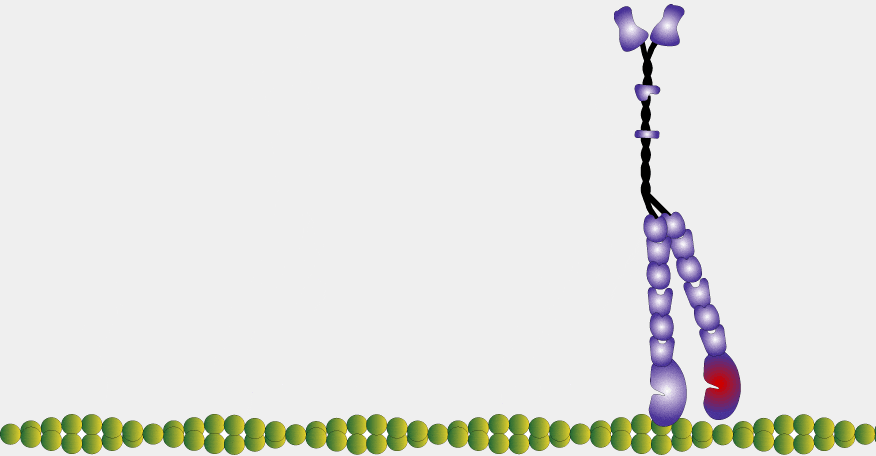
4. Les myosines V, comprennant trois membres, Myo5a, Myo5b et Myo5c, sont des moteurs de transport intracellulaire qui assurent le déplacement de différents cargos, notamment des organites, le long des microfilaments d'actine.
c. Le domaine moteur de la myosine VI comporte un insert spécifique de 26 résidus, l'Insert-1, situé à proximité de la poche de liaison aux nucléotides qui participe à la régulation de la cinétique du moteur, notamment en ralentissant la fixation de l'ATP.
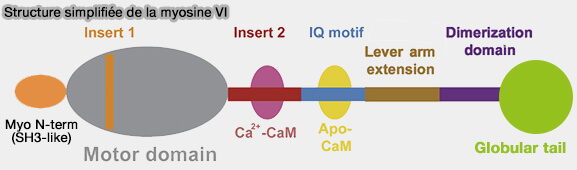
Structure simplifiée de la myosine VI
(Figure : vetopsy.fr adaptée d'après Sweeney et Houdusse)
L'Insert-2 fixe une calmoduline associée au Ca2+ (Ca2+-CaM), tandis que le motif IQ fixe une seconde calmoduline sous sa forme dépourvue de Ca2+ (apo-CaM).
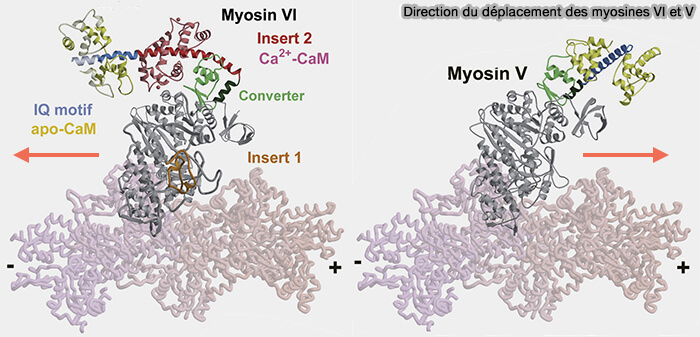
L'Insert-2 et la calmoduline qui lui est associée forment une extension du convertisseur qui réoriente d'environ 120° le bras de levier et inverse ainsi la direction du déplacement produit par celui-ci.
Direction de déplacement des myosines VI et V
(Figure : vetopsy.fr d'après Sweeney et Houdusse)
Le deuxième domaine PH (PH2) se lie préférentiellement au PI(3,4,5)P3 ou PIP3 et contribue ainsi au recrutement de Myo10 à la membrane et à son activité dans les filopodes.
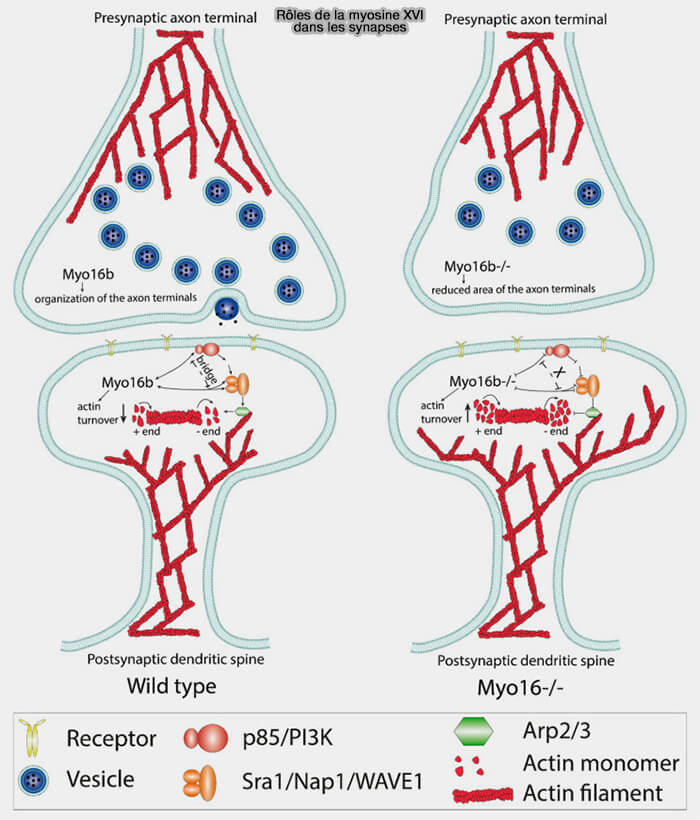
10. La myosine XVI (Myo16), principalement exprimée dans le système nerveux, participe à l'organisation des synapses et exerce des fonctions différentes dans leurs compartiments postsynaptique et présynaptique.
Elle ralentit notamment le renouvellement des microfilaments d'actine.
La longue queue de Myo16b relie la voie PI3K au complexe régulateur WAVE1 et au complexe Arp2/3, participant ainsi au contrôle de l'organisation et du renouvellement des réseaux d'actine.
Rôles de la myosine XVI dans les synapses
(Figure : vetopsy.fr d'après Telek et coll)
b. Dans le compartiment présynaptique, Myo16 contribue au maintien de la taille des terminaisons présynaptiques et de leur nombre de vésicules synaptiques (Myosin XVI in the Nervous System 2020).
En l'absence de Myo16, les terminaisons présynaptiques sont plus petites et contiennent moins de vésicules synaptiques, mais le mécanisme responsable de cet effet reste mal déterminé.
c. Myo16 possède en amont de son domaine moteur une extension N-terminale particulière, Myo16Ank, qui comporte huit répétitions ankyrine.
Cette région interagit avec la sous-unité catalytique de la protéine phosphatase 1 (PP1c) et inhibe son activité, mais la fonction physiologique précise de cette interaction reste à déterminer.
11. Les myosines XVIII (Myo18a et Myo18b) participent à l'organisation du cytosquelette d'actine et à différents processus de migration, d'adhérence et de forme cellulaires.
12. La myosine XIX (Myo19) est principalement associée aux mitochondries et participe à leur transport et à leur positionnement le long des microfilaments d'actine


 désassemblage des réseaux d'actine).