La liaison cyclique de la myosine II aux microfilaments d'actine couple l'hydrolyse de l'ATP aux changements conformationnels du moteur qui produisent force et mouvement.
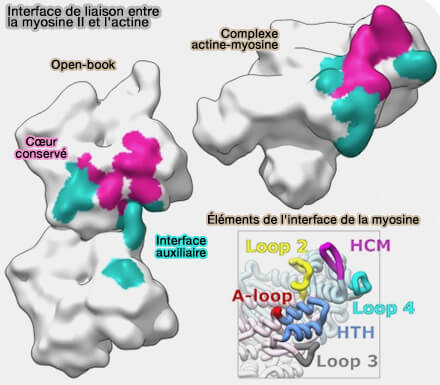
Cette interface comprend notamment la HCM-loop, les loops 2, 3 et 4 et un motif helix-turn-helix (HTH).
Elle comporte un cœur conservé entre les différentes classes de myosines et une interface auxiliaire plus variable, qui contribue à la spécificité de leurs interactions avec l'actine.
Cycle mécanochimique
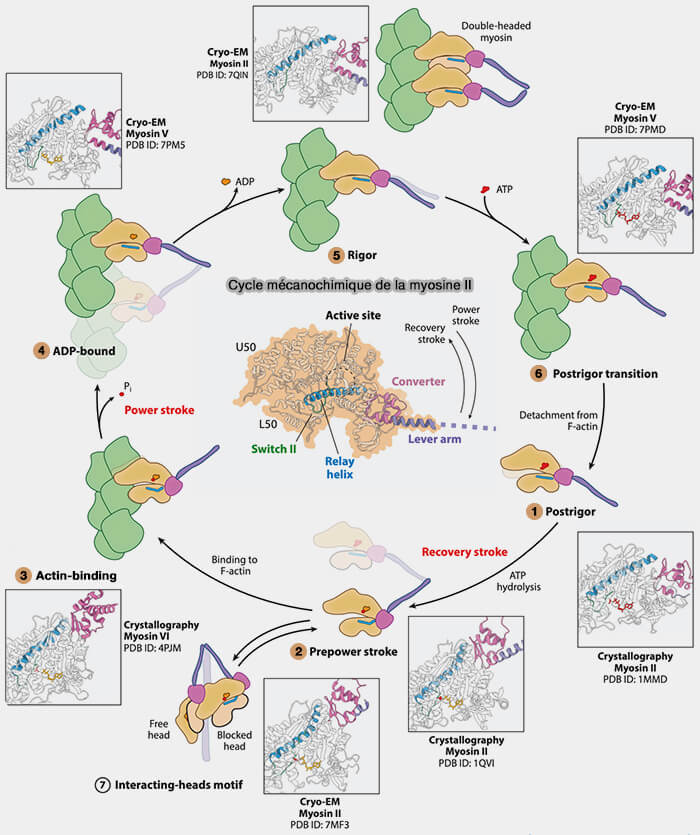
Le cycle mécanochimique de la myosine II correspond à une succession d'états nucléotidiques et de changements conformationnels du domaine moteur, couplés à des variations de son affinité pour l'actine.
Il peut être décrit ici en six étapes principales, depuis l'état de rigor jusqu'au retour à cet état après un cycle.
Remarque : le découpage du cycle mécanochimique varie selon les auteurs, notamment selon la manière dont sont individualisées la liaison à l'actine, la libération de Pi, le power stroke et la libération d'ADP.
La myosine présente alors une faible affinité pour l'actine et peut poursuivre son cycle ATPasique.
2. Dans l'état pre-power stroke, l'hydrolyse de l'ATP produit de l'ADP et du Pi, qui restent liés au domaine moteur, tandis que la myosine demeure détachée de l'actine.
L'hydrolyse de l'ATP est couplée au recovery stroke, qui provoque la rotation d'environ 60° du bras de levier par rapport au domaine moteur vers une position " armée ", c'est-à-dire une conformation pre-power stroke préparant la myosine à effectuer le power stroke.
Dans l'état pre-power stroke, SW1 et SW2 adoptent une conformation fermée autour du site nucléotidique, stabilisant l'état myosine-ADP-Pi avant la libération de Pi.
Cycle mécanochimique de la liaison myosine II
(Figure d'après Wang et Raunser)
3. Dans l'état de liaison à l'actine (Actin binding), le complexe myosine-ADP-Pi se lie au microfilament d'actine, initialement avec une faible affinité.
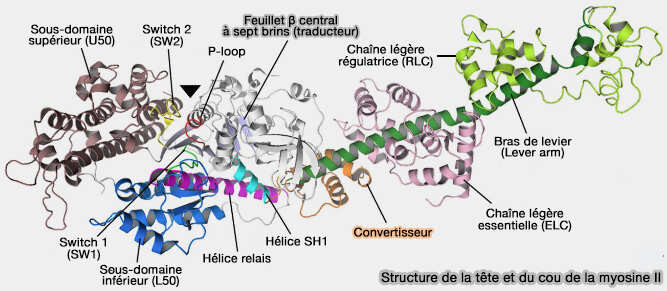
a. Cette interaction provoque des changements conformationnels de l'interface actine-myosine et la fermeture progressive de la grande fente entre U50 et L50, qui participent tous deux à l'interface de liaison avec l'actine, conduisant à une liaison forte.
La liaison à l'actine favorise la libération du phosphate inorganique (Pi), qui accompagne la transition vers l'état ADP-bound (4) et le power stroke.
En l'absence d'actine, la libération de Pi par la myosine-ADP-Pi est lente et la liaison à l'actine l'accélère fortement, couplant ainsi l'activité ATPasique de la myosine à son interaction avec le microfilament.
b. Le déplacement produit par le bras de levier (working stroke) est de l'ordre de 5-15 nm chez les myosines II, avec une valeur d'environ 8 nm souvent rapportée pour les myosines II musculaires et une force développée de l'ordre de 3-5 pN par tête.
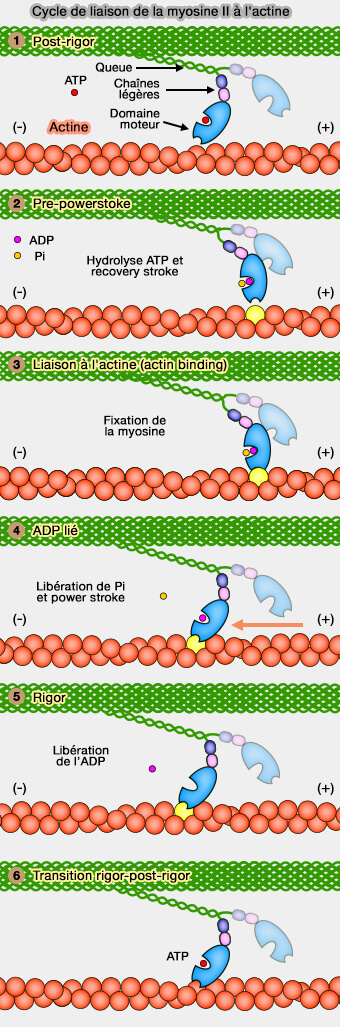
Liaison simplifiée myosine-actine
(Figure : vetopsy.fr)
L'amplitude du working stroke dépend notamment de la longueur du bras de levier, car, pour une même rotation du convertisseur, un bras de levier plus long produit un déplacement plus important.
Remarque : le working stroke varie selon les myosines et leurs isoformes et peut atteindre environ 10-14 nm chez certaines myosines I et 20-25 nm chez la myosine V, dont le step size atteint environ 36 nm en raison de son déplacement processif à deux têtes.
4. Dans l'état ADP-bound, l'ADP reste lié au domaine moteur tandis que la myosine est fortement liée à l'actine dans une conformation post-power stroke, c'est-à-dire la conformation atteinte à l'issue du power stroke.
Le convertisseur et le bras de levier ont alors effectué leur rotation productrice de force et se trouvent dans leur position post-power stroke.
a. Dans les muscles, une tête de myosine tire sur un filament d'actine, mais celui-ci est mécaniquement relié au reste du sarcomère, de la fibre musculaire et finalement aux tendons.
b. Une force extérieure exercée sur le muscle, par exemple le poids d'un objet qu'il soulève ou maintient, est transmise jusqu'aux filaments et s'oppose à leur glissement.
Si la force produite par les myosines est supérieure à cette résistance, les filaments glissent et le muscle se raccourcit.
Si les forces s'équilibrent, les myosines développent une tension sans déplacement net des filaments et la longueur du muscle reste constante.
Les ponts actine-myosine peuvent alors fonctionner comme des strain-holding cross-bridges (ponts actine-myosine sous tension).
Si la résistance est supérieure à la force produite, elle peut s'opposer au power stroke et même entraîner un allongement du muscle malgré son activation.
5. Dans l'état de rigor, l'ADP a été libéré de la poche nucléotidique et la myosine, dépourvue de nucléotide, demeure fortement liée à l'actine.
La myosine conserve alors une conformation post-power stroke.
L'état de rigor se distingue donc de l'état ADP-bound précédent par son état nucléotidique.
6. Dans l'état de transition rigor-post-rigor, l'ATP se fixe dans la poche nucléotidique alors que la myosine est encore liée à l'actine.
Cette fixation déclenche les changements conformationnels qui diminuent fortement l'affinité de la myosine pour l'actine et conduisent à son détachement et au retour à l'état post-rigor (1), permettant le début d'un nouveau cycle.