Les microfilaments d'actine forment un réseau dynamique et polarisé dont le remodelage permanent assure la morphologie, les propriétés mécaniques et les mouvements des cellules.
Les microfilaments d'actine, d'environ 7 nm de diamètre, constituent l'un des trois grands réseaux du cytosquelette, avec :
1. L'actine polymérisée s'organise en deux chaînes parallèles enroulées l'une autour de l'autre pour former un filament hélicoïdal flexible.
Cette architecture confère aux microfilaments une résistance mécanique élevée tout en conservant la souplesse nécessaire à leur remodelage permanent.
Les microfilaments peuvent s'organiser en différents réseaux adaptés aux contraintes mécaniques et aux fonctions exercées par la cellule (organisation cellulaire du réseau d'actine).
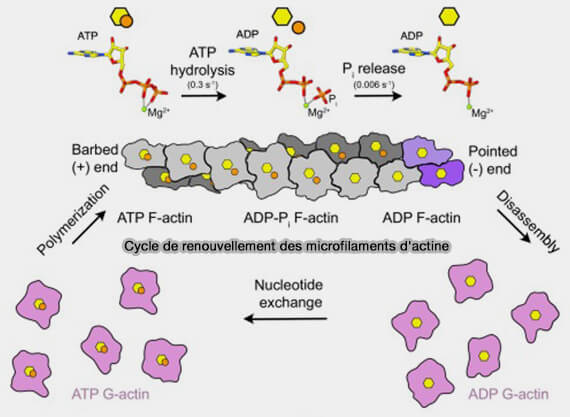
2. Les microfilaments possèdent une polarité structurale résultant de l'orientation identique de tous les monomères d'actine au sein du filament, qui définit deux extrémités aux propriétés dynamiques différentes :
l’extrémité (+) ou extrémité barbée (barbed end),où les échanges de sous-unités sont généralement les plus rapides,
l’extrémité (-), ou extrémité pointue (pointed end), qui contribue également au renouvellement permanent des microfilaments, mais à un rythme généralement plus lent.
Organisation, dynamique et régulation du réseau d'actine
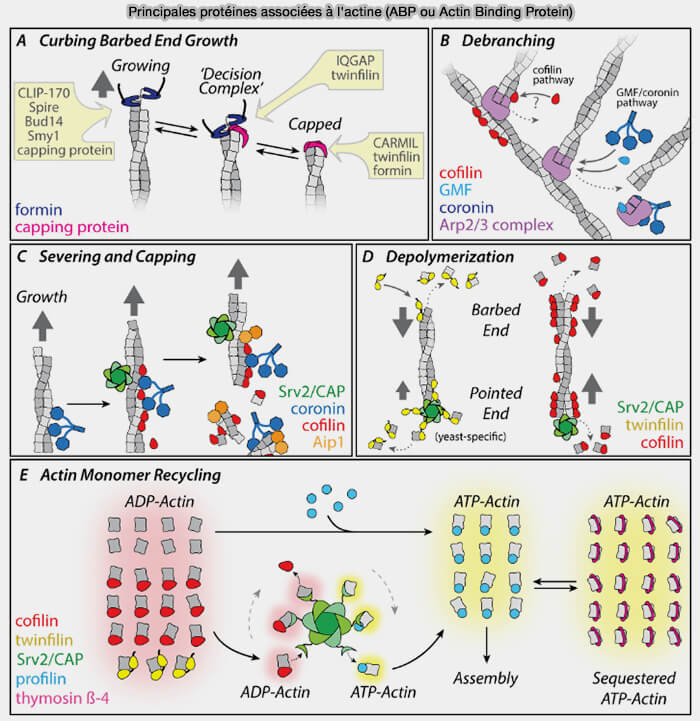
Les microfilaments d'actine constituent un réseau hautement dynamique dont l'organisation résulte d'un équilibre permanent entre polymérisation, dépolymérisation et réorganisation des filaments.
Les nucléateurs à domaines WH2 multiples (tandem-monomer-binding nucleators) favorisent l'assemblage de plusieurs sous-unités d'actine afin de constituer un noyau de polymérisation.
Les microfilaments d'actine s'organisent en architectures tridimensionnelles adaptées aux propriétés mécaniques et aux fonctions spécifiques de chaque cellule.
Les microfilaments peuvent s'organiser en plusieurs architectures principales.
1. Les faisceaux parallèles (parallel bundles) sont constitués de microfilaments linéaires orientés dans la même direction, généralement nucléés et allongés par les formines.
Les extrémités barbées (+) sont généralement dirigées vers la membrane plasmique et cette organisation est caractéristique :
Remarque : les faisceaux antiparallèles ne sont pas tous contractiles.
En l'absence de myosine II, ils assurent principalement un rôle structural, comme c'est le cas des fibres de stress dorsales ou fr certains faisceaux transitoires observés au cours de la migration cellulaire et de la morphogenèse.
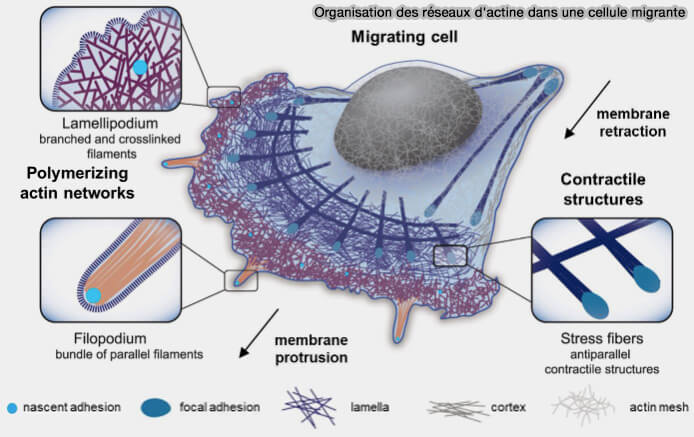
Organisation des réseaux d'actine dans une cellule migrante
(Figure : vetopsy.fr adaptée d'après Vigouroux, depuis Letort et coll)
3. Les réseaux ramifiés (branched networks) sont constitués de microfilaments reliés par le complexe Arp2/3, qui nuclée des branches selon un angle d'environ 70° par rapport au filament-mère.
Ils forment un maillage dense, principalement localisé dans :
le cortex cellulaire, situé sous la membrane plasmique, où il contribue au soutien de la membrane et aux propriétés mécaniques de la cellule,
4. Les réseaux tridimensionnels (orthogonal/cross-linked networks) correspondent à des microfilaments reliés selon des orientations variées.
a. Ils forment des maillages plus ou moins lâches qui confèrent à la cellule résistance mécanique, élasticité et capacité de déformation, comme dans le cytosquelette sous-membranaire des érythrocytes et dans certaines régions du cortex cellulaire.
b. Selon les protéines de réticulation qui les organisent, les faisceaux de microfilaments présentent des espacements variables et peuvent être :
plus espacés, comme ceux organisés par l'α-actinine (≈ 30 nm), permettant l'intercalation de la myosine II,
très lâches et déformables, comme les réseaux réticulés par la filamine ou la spectrine (jusqu'à ≈ 160 nm).
Fonctions biologiques essentielles
Les microfilaments d'actine participent à de nombreuses fonctions cellulaires en assurant la production de forces mécaniques, le remodelage de la cellule et son interaction avec l'environnement.
1. Les principales fonctions biologiques des microfilaments d'actine comprennent :
Fonctions des microfilaments d'actine
(Figure : vetopsy.fr)
le maintien de la forme cellulaire et des propriétés mécaniques de la cellule,


 organisation cellulaire du réseau d'actine).