


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Polymérisation
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

La polymérisation de l'actine correspond au processus dynamique par lequel les monomères d'actine G s'assemblent en microfilaments d'actine F, assurant le renouvellement permanent et les propriétés mécaniques du cytosquelette.
1. Les microfilaments d'actine sont des polymères polarisés dont l'assemblage et le renouvellement reposent sur une succession d'événements moléculaires coordonnés.
La polymérisation dépend :
- des propriétés intrinsèques de l'actine,
- de son état nucléotidique (ADP ou ATP),
- des conditions physicochimiques du milieu.
2. Dans les cellules, cette dynamique est ensuite régulée par de nombreuses protéines associées à l'actine (ABP ou Actin Binding Protein).
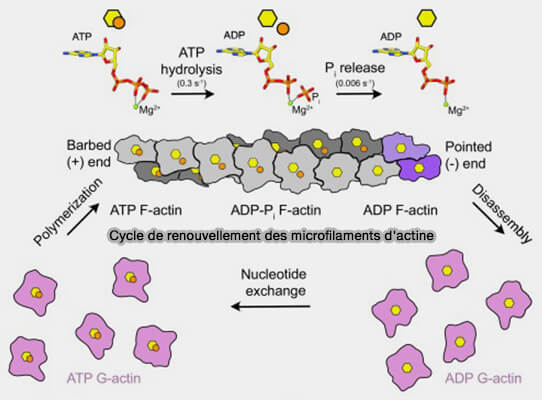
(Figure : vetopsy.fr d'après Oosterheert et coll)

Vous pouvez lire : Structural insights into actin filament turnover (2025).
Différentes phases de la polymérisation de l'actine
La polymérisation de l'actine se déroule en trois phases successives qui possèdent chacune des caractéristiques cinétiques et structurales spécifiques qui conditionnent la dynamique des microfilaments (The Mechanisms of Thin Filament Assembly and Length Regulation in Muscles 2022) :
- la nucléation,
- l'élongation,
- l'état stationnaire.
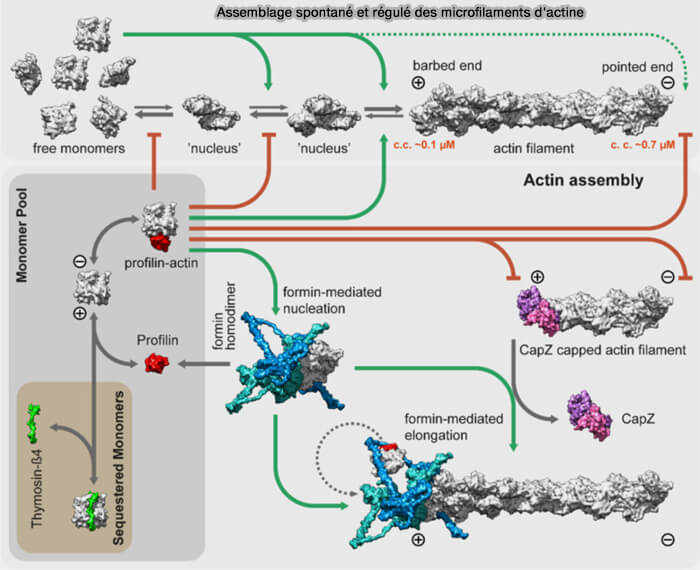
(Figure : vetopsy.fr d'après Bogdan et coll)
Phase de nucléation
La nucléation, première étape de la polymérisation, consiste en la formation d'un noyau stable, généralement constitué de trois sous-unités d'actine-ATP, à partir duquel le microfilament peut s'allonger.
1. Cette étape est cinétiquement limitante, car les dimères et les trimères naissants sont instables et se dissocient facilement avant de former un noyau de polymérisation stable.
Elle constitue ainsi la phase la plus lente de la polymérisation spontanée.
2. Dans les cellules, la nucléation spontanée est peu fréquente et est généralement catalysée par des protéines de nucléation qui assurent un contrôle spatial et temporel de la formation des nouveaux microfilaments.
- Les formines favorisent la formation de filaments linéaires.
- Le complexe Arp2/3 initie la formation de réseaux ramifiés qui nécessite l'intervention de NPF (Nucleation-Promoting Factor), tels que les protéines WASP et WAVE.
- Les nucléateurs à domaines WH2 multiples (tandem-monomer-binding nucleators) favorisent l'assemblage de plusieurs sous-unités d'actine afin de constituer un noyau de polymérisation.
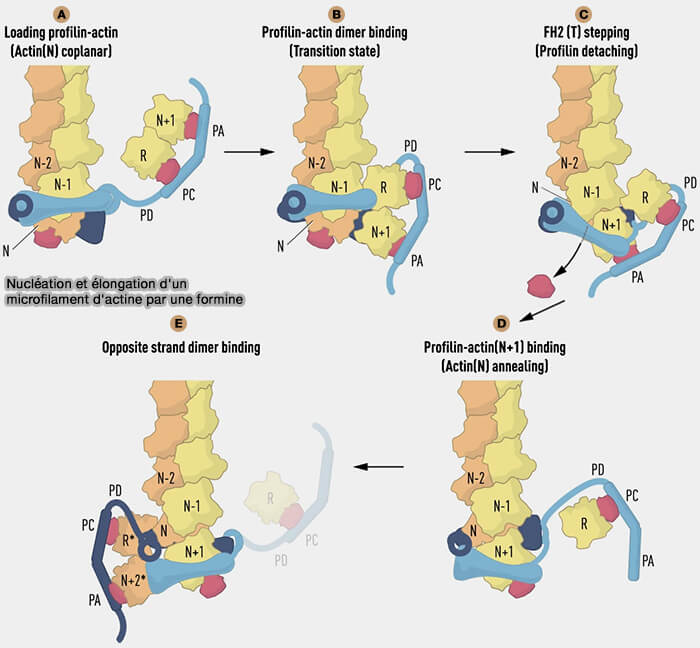
(Figure : vetopsy.fr d'après Schutt et coll)
Phase d'élongation
1. Après la formation d'un noyau stable, le microfilament s'allonge par addition successive de sous-unités d'actine-ATP à ses deux extrémités.
a. Toutefois, l'incorporation est beaucoup plus rapide à l'extrémité barbée (+) qu'à l'extrémité pointue (-), en raison de leurs constantes cinétiques et de leur organisation structurale différente.
La dernière sous-unité d'actine adopte une conformation particulière qui favorise des interactions entre la boucle D (DNase I-binding loop) d'un monomère d'actine G et le sillon hydrophobe du brin opposé, ce qui stabilise cette extrémité du filament.
b. La vitesse d'allongement dépend principalement :
- de la concentration en actine G disponible dans le milieu,
- des constantes cinétiques d'association (kon) et de dissociation (koff) propres à chaque extrémité du microfilament.
2. Dans les cellules, la vitesse d'allongement est également modulée par plusieurs protéines associées à l'actine ( protéines d'élongation) :
- les formines, qui assurent une élongation processive des microfilaments linéaires,
- les protéines de la famille Ena/VASP, qui favorisent l'incorporation des monomères d'actine à l'extrémité barbée (+) et limitent le coiffage.
Constantes cinétiques d'association et de dissociation
Les constantes d'association (kon) et de dissociation (koff) diffèrent entre les deux extrémités du microfilament et expliquent leurs vitesses d'allongement respectives (Structural basis for the slow dynamics of the actin filament pointed end 2011).
1. En présence d'actine-ATP, l'extrémité barbée (+) présente une constante d'association, kon(+), d'environ 11,6 µM⁻1s-1, contre kon(-) 1,3 µM-1s-1 pour l'extrémité pointue (-).
Ces différences expliquent que la vitesse d'allongement soit environ dix fois plus élevée à l'extrémité barbée (+).
2. Les constantes de dissociation (koff) sont voisines : environ 1,4 s-1 à l'extrémité (+) et 0,8 s-1 à l'extrémité (-).
3. La vitesse instantanée d'élongation d'une extrémité du microfilament peut alors s'exprimer par la relation :
$v_{élongation} = k_{\mathrm{on}}[\mathrm{actine\ G}] - k_{\mathrm{off}}$
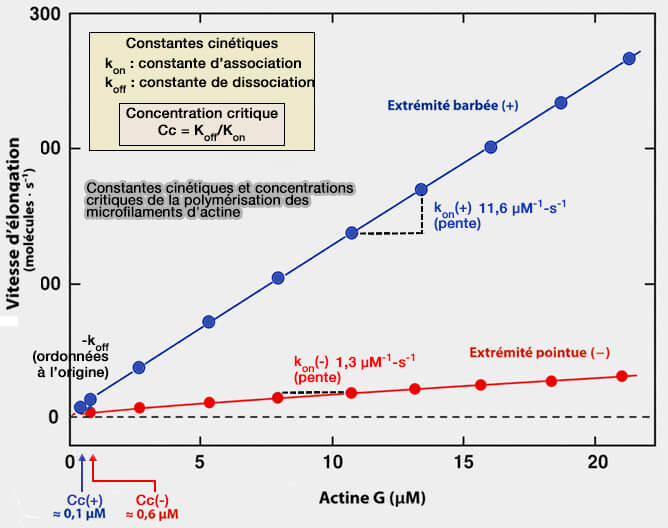
(Figure : vetopsy.fr, adaptée d'après Pollard 1986)
Concentrations critiques
Les constantes d'association et de dissociation permettent de définir, pour chacune des deux extrémités du filament, une concentration critique (Cc), correspondant à la concentration d'actine G pour laquelle la vitesse d'addition des sous-unités est égale à leur vitesse de dissociation,
La vitesse d'élongation est alors nulle ($v=0$) et vérifie la relation :
$C_c = \dfrac{k_{\mathrm{off}}}{k_{\mathrm{on}}}$
1. La concentration critique de l'extrémité barbée (Cc+) est d'environ 0,12 µM.
- Au-dessus de cette valeur, l'extrémité (+) s'allonge.
- En dessous, elle se raccourcit.
2. La concentration critique de l'extrémité pointue (Cc-) est d'environ 0,6 µM.
L'élongation de cette extrémité nécessite donc une concentration en actine G plus élevée que celle requise pour l'extrémité barbée.
3. À une concentration intermédiaire de 0,2 µM d'actine G, l'extrémité barbée (+) s'allonge encore, tandis que l'extrémité pointue (-) se raccourcit.
Cette différence de comportement est à l'origine du phénomène de treaddmilling.
Incorporation des sous-unités d'actine-ATP et cycle nucléotidique
Les sous-unités d'actine s'incorporent préférentiellement au filament sous forme d'actine-ATP, principalement à l'extrémité barbée (+) .
1. La polymérisation stimule fortement l'activité ATPasique intrinsèque de l'actine, entraînant l'hydrolyse de l'ATP en ADP et phosphate inorganique ( hydrolyse de l'ATP).
a. L'actine se présente alors sous la forme d'un état intermédiaire actine-ADP-Pi, dans lequel le phosphate inorganique demeure transitoirement lié à la molécule.
- Les études structurales ont montré que ce phosphate est retenu dans une cavité distincte du site de liaison du nucléotide (Structural Basis for Actin Assembly, Activation of ATP Hydrolysis, and Delayed Phosphate Release 2010).
- Le phosphate inorganique est ainsi libéré plus lentement, en quelques minutes selon les conditions expérimentales, transformant progressivement l'actine-ADP-Pi en actine-ADP (Inorganic phosphate regulates the binding of cofilin to actin filaments 2006).
b. Des travaux plus récents de cryomicroscopie électronique ont précisé les mécanismes moléculaires de l'hydrolyse de l'ATP et de la libération retardée du phosphate inorganique Structural insights into actin filament turnover 2025).
2. Le filament présente ainsi un gradient nucléotidique.
- Les sous-unités récemment incorporées, proches de l'extrémité barbée (+), sont majoritairement sous forme d'actine-ATP, puis d'actine-ADP-Pi.
- Les régions plus anciennes du microfilament, en particulier vers l'extrémité pointue (-), sont constituées principalement d'actine-ADP.

Cette évolution progressive de l'état nucléotidique modifie les propriétés structurales du microfilament et son affinité pour de nombreuses protéines associées à l'actine (ABP), contribuant ainsi à son renouvellement permanent.
Phase stationnaire et treadmilling
1. La phase stationnaire correspond à une phase d'équilibre dynamique au cours de laquelle la longueur globale du microfilament reste pratiquement constante.
- À ce stade, l'incorporation de nouvelles sous-unités à l'extrémité barbée (+) est compensée par leur dissociation à l'extrémité pointue (-).
- La longueur du microfilament reste ainsi globalement constante, malgré un échange continu de ses sous-unités.
2. La dissociation des sous-unités, ou dépolymérisation du microfilament, correspond au détachement progressif des sous-unités d'actine, principalement à l'extrémité pointue (-).
- Les sous-unités libérées sont majoritairement sous forme d'actine-ADP ( protéines de sectionnement).
- Elles sont ensuite recyclées en actine G-ATP par les protéines de séquestration avant d'être réincorporées dans les microfilaments ( protéines de séquestration).
3. Cet échange continu des sous-unités, sans modification notable de la longueur du microfilament, constitue le phénomène de tapis roulant ou treadmilling.
- Les sous-unités ne se déplacent pas le long du microfilament.
- L'impression de déplacement résulte de l'ajout continu de nouvelles molécules d'actine-ATP à l'extrémité barbée (+), tandis que les plus anciennes, devenues majoritairement de l'actine-ADP, sont progressivement libérées à l'extrémité pointue (-).
Contrôle cellulaire de la polymérisation
Dans les cellules, la polymérisation et le renouvellement des microfilaments ne reposent pas uniquement sur les propriétés intrinsèques de l’actine et sont contrôlés spatialement et temporellement par de nombreuses protéines associées à l’actine (ABP).
Les protéines associées à l'actine (ABP ou Actin Binding Protein) sont étudiées dans une page spécifique.
Ces protéines régulent notamment :
- la disponibilité des monomères d'actine G ( séquestration des monomères),
- la nucléation des nouveaux microfilaments,
- l'élongation de leurs extrémités,
- leur coiffage,
- leur sectionnement et leur dépolymérisation,
- leur stabilisation des microfilaments,
- leur organisation en faisceaux et en réseaux,
- leurs interactions avec les myosines et les autres constituants du cytosquelette (coordination des trois réseaux du cytosquelette).
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation