


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Structure de l'actine
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

L'actine se présente sous une forme globulaire (actine G) et une forme filamenteuse (actine F), dont l'organisation structurale constitue la base de l'architecture et de la dynamique des microfilaments d'actine.
Vue d'ensemble
1. L'actine est une protéine hautement conservée au cours de l'évolution qui constitue le principal composant des microfilaments du cytosquelette.
- Chez les eucaryotes, elle représente l'une des protéines les plus abondantes, pouvant atteindre jusqu'à 10 % des protéines totales dans les cellules musculaires et environ 1 à 5 % dans la plupart des autres types cellulaires.
- Présente dans pratiquement toutes les cellules, l'actine parcticipe à de nombreux processus biologiques (
 fonctions biologiques essentielles).
2. L'actine existe sous deux formes interconvertibles :
- l'actine G (globular actin), forme monomérique globulaire,
- l'actine F (filamentous actin), forme polymérisée filamenteuse dont l'assemblage est à l'origine des microfilaments d'actine.

La transition entre ces deux formes constitue le fondement de la dynamique du cytosquelette d'actine ( polymérisation de l'actine).
Remarque : bien que l'actine soit connue comme le principal constituant des microfilaments du cytosquelette, elle est également présente dans le noyau où elle participe notamment au remodelage de la chromatine, à la régulation de la transcription, à la réparation de l'ADN et à d'autres processus nucléaires ( actine nucléaire).
Les 6 isoformes de l'actine
Chez les mammifères, la famille de l'actine comprend six isoformes codées par des gènes distincts (Structural and functional mechanisms of actin isoforms 2024).
Bien qu'elles présentent une très forte conservation de leur séquence en acides aminés (environ 93 à 99 % d'identité selon les isoformes), elles possèdent des profils d'expression tissulaire et des fonctions physiologiques partiellement spécialisées permettant une adaptation de l'organisation et de la dynamique du cytosquelette aux différents types cellulaires (Structural insights into actin isoforms 2023 qui développe plus précisément les structures).
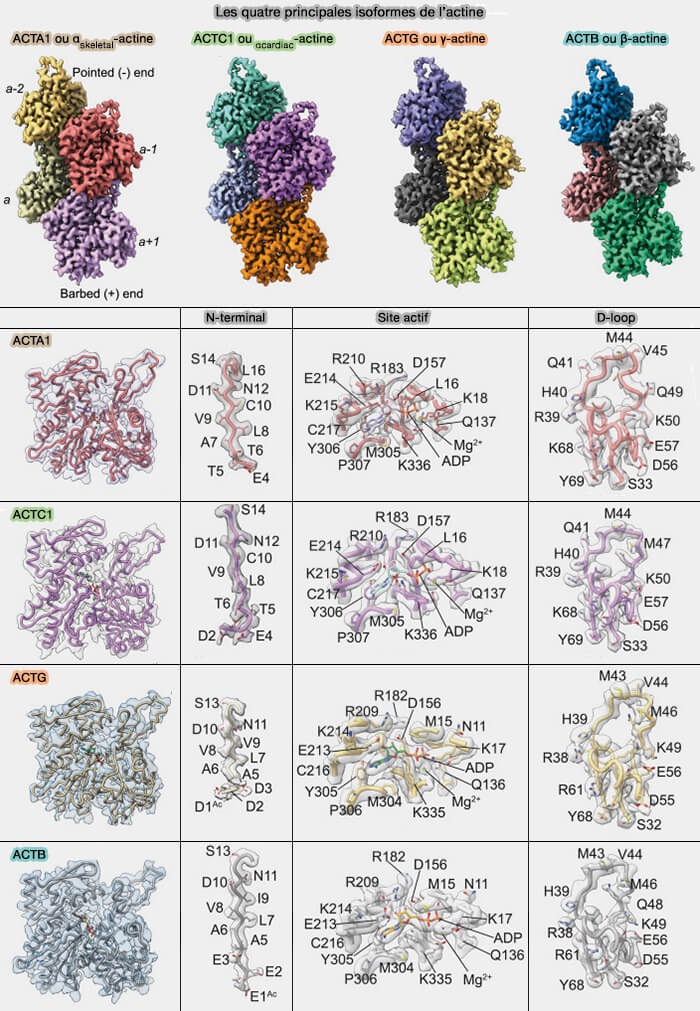
(Figure : vetopsy.fr d'après Arora et coll)
1. Les trois isoformes d'α-actine sont principalement exprimées dans les cellules musculaires :
- l'α-actine squelettique (ACTA1 ou αskeletal-actine),
- l'α-actine cardiaque (ACTC1 ou αcardiac-actine),
- l'α-actine des muscles lisses (ACTA2 ou αsmooth-actine),
2. Les deux isoformes d'γ-actine comprennent :
- la γ-actine (ACTG2 ou γsmooth-actine) des muscles lisses,
- la γ-actine cytoplasmique (ACTG1 ou γcyto-actine), exprimée dans la plupart des cellules non musculaires.
3. La β-actine (ACTB ou βcyto-actine) est également exprimée dans la majorité des cellules non musculaires, où elle participe notamment à (Essential nucleotide- and protein-dependent functions of Actb/β-actin 2018) :
- à l'organisation du cytosquelette,
- à la migration cellulaire
- au trafic vésiculaire,
- à l'adhérence cellulaire,
- à la cytokinèse.
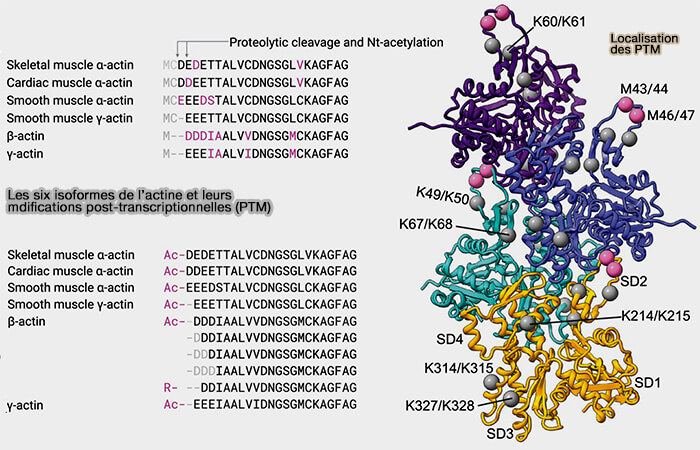
(Figure : vetopsy.fr d'après Heissler et Chinthalapudi)
Remarque : chez les procaryotes, la protéine MreB est considérée comme un homologue évolutif de l'actine (Archaeal actins and the origin of a multi-functional cytoskeleton 2024).
Bien que son identité de séquence avec l'actine eucaryote soit faible (environ 15 %), sa structure tridimensionnelle et son mode de polymérisation présentent de fortes similitudes avec ceux du monomère d'actine.
Structure de l'actine G
L'actine G (globular actin) est la forme monomérique soluble de l'actine.

(Figure : vetopsy.fr avec l'aimable
autorisation de Roberto Dominguez)
1. Chaque molécule d'actine G comprend quatre sous-domaines organisés en deux lobes.
a. Les sous-domaines I et II constituent le petit lobe.
- le sous-domaine I (résidus 1-32, 70-144 et 338-375) contient les extrémités N- et C-terminales,
- le sous-domaine II (résidus 33-69) renferme notamment la boucle D ou DNase I-binding loop (résidus 38-49).
b. les sous-domaines III et IV forment le grand lobe.
- le sous-domaine III (résidus 145-180 et 270-337),
- le sous-domaine IV (résidus 181-269).
Remarque : chacun des deux lobes contient un coeur α/β constitué d'un feuillet β parallèle entouré d'hélices α, formant une architecture de type Rossmann-like fold, caractéristique de nombreuses protéines liant des nucléotides.
2. Le sillon nucléotidique (nucleotide-binding cleft) est une profonde crevasse qui sépare les deux lobes de la molécule.

(Figure : vetopsy.fr d'après Rouiller)
a. Elle renferme un nucléotide (ATP ou ADP) associé à un cation divalent, généralement Mg2+ dans les conditions physiologiques (Ca2+ pouvant être utilisé in vitro).
- L'actine G-ATP est la forme préférentiellement incorporée à l'extrémité barbée (+) des microfilaments ( polymérisation de l'actine).
- L'actine G-ADP L'actine G-ADP résulte principalement de la dissociation des sous-unités d'actine à l'extrémité pointue (-) des microfilaments ( treadmilling).
b. Le fond de cette crevasse constitue une véritable charnière moléculaire autorisant des mouvements relatifs des deux lobes (cf figure ci-contre).
Ces mouvements, induits par la liaison des nucléotides, des ions divalents ainsi que par l'incorporation de l'actine G dans les microfilaments, jouent un rôle essentiel dans l'l'hydrolyse de l'ATP, la polymérisation des microfilaments et la reconnaissance de l'actine par de nombreuses ABP (Actin-Binding Proteins).
3. Le sillon hydrophobe (hydrophobic clef ou target-binding cleft) est une poche de surface localisée à l'interface des sous-domaines I et III.
Il comprend notamment la boucle hydrophobe (résidus 262-274) du sous-domaine III, qui joue un rôle majeur dans (Actin Hydrophobic Loop 262-274 and Filament Nucleation and Elongation 2008) :
- les interactions longitudinales entre les monomères d'actine au sein des microfilaments,
- la nucléation,
- l'élongation et la stabilité des filaments,
- la fixation de nombreuses protéines associées à l'actine (ABP ou Actin Binding Protein).
4. À pH physiologique, l'actine G porte une charge globale négative.
Sa conformation dépend de la nature du nucléotide lié (ATP, ADP-Pi ou ADP).
Structure de l'actine F
L'actine F (filamentous actin) résulte de la polymérisation de monomères d'actine G en un polymère hélicoïdal constituant les microfilaments du cytosquelette.
La transition de l'actine G vers l'actine F s'accompagne d'un changement conformationnel caractérisé par une rotation d'environ 20° entre les deux lobes de la molécule, conduisant à un aplatissement du monomère et permettant son incorporation dans le filament (The nature of the globular-to fibrous-actin transition 2009).
Architecture générale du microfilament
L'actine F est constituée de deux chaînes d'actine G entrelacées selon une double hélice gauche dont les monomères sont tous orientés dans le même sens, conférant au filament une polarité structurale.
Les monomères d'actine G sont représentés par des couleurs différentes afin de mettre en évidence l'organisation en double hélice. Cette représentation correspond à la projection d'une structure tridimensionnelle.

(Figure : vetopsy.fr d'après Roberto Dominguez)
1. Le microfilament présente un diamètre d'environ 7 à 9 nm et un pas hélicoïdal d'environ 36 nm.
- Une répétition complète comprend 13 monomères par brin répartis sur six tours d'hélice, soit 26 sous-unités pour les deux brins et une longueur d'environ 72 nm.
- Cette architecture confère au microfilament une grande résistance mécanique tout en conservant la flexibilité nécessaire à son remodelage permanent.
2. Chaque monomère (≈ 2,75 nm) établit des interactions avec quatre sous-unités voisines :
- deux contacts longitudinaux avec les monomères précédent et suivant du même brin, i.e. au-dessus et au-dessous,
- deux contacts latéraux avec les monomères du brin adjacent.
a. La stabilité des microfilaments repose sur un ensemble d'interactions spécifiques entre les monomères d'actine G dont les principales sont :
- la boucle D (DNase I-binding loop),
- la boucle hydrophobe (résidus 262-274),
- plusieurs régions des sous-domaines I, III et IV.
b. Ces interfaces constituent également les principaux sites de liaison de nombreuses protéines associées à l'actine (ABP ou Actin Binding Protein) impliquées dans la régulation de l'organisation et de la dynamique des microfilaments.
c. L'organisation asymétrique de ces interfaces de contact aux deux extrémités du filament est à l'origine de la polarité structurale des microfilaments et de leurs propriétés dynamiques.
3. Dans les cellules, les microfilaments d'actine ne sont généralement pas isolés et s'organisent en (organisation cellulaire du réseau d'actine) :
- réseaux branchés, principalement nucléés par le complexe Arp2/3,
- faisceaux parallèles, généralement formés à partir de microfilaments linéaires nucléés par les formines,
- faisceaux contractiles, associant les microfilaments d'actine aux myosines.
Polarité structurale des microfilaments
La polarité structurale des microfilaments résulte de l'assemblage de monomères d'actine G-ATP orientés dans le même sens, ce qui confère au filament deux extrémités présentant des organisations moléculaires et des propriétés dynamiques différentes.
Les dénominations extrémité barbée (barbed end) et extrémité pointue (pointed end) proviennent des expériences historiques de décoration des microfilaments par la sous-fragment S1 de la myosine, qui produisent un aspect en pointe de flèche orienté vers l'extrémité (-).
Extrémité barbée (+)
L'extrémité barbée (barbed end) constitue le principal site d'incorporation des nouveaux monomères d'actine G, assurant la polymérisation du filament.
Les dernières sous-unités sont majoritairement liées à l'ATP (actine G-ATP), ce qui laisse accessibles les principales interfaces longitudinales et latérales nécessaires à l'addition de nouveaux monomères.
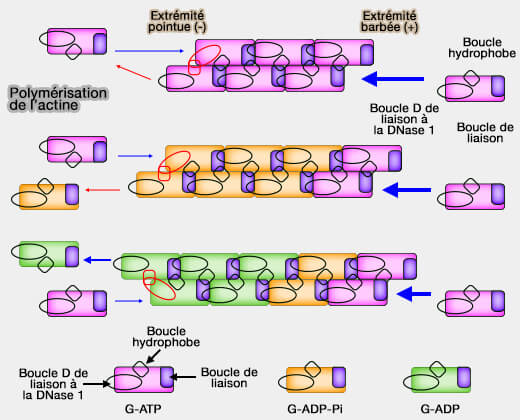
(Figure : vetopsy.fr d'après Akihiro Narita)
1. Les interactions longitudinales impliquent notamment :
- la boucle de liaison de la sous-unité n-2 (résidus 283-294 du sous-domaine III), entourée par les résidus 61-65, 200-208 et 241-247 de la sous-unité n, selon une organisation souvent comparée à une balle maintenue dans une main,
- la boucle D (DNase I-binding loop, résidus 38-49 du sous-domaine II) de la sous-unité n, qui s'étend vers le sillon hydrophobe situé à la surface de la sous-unité n−2.
2. Les interactions latérales entre les deux brins mettent notamment en jeu :
- les résidus 191-199 du sous-domaine IV de la sous-unité n avec les résidus 110-115 du sous-domaine I de la sous-unité n+1.
- la boucle hydrophobe (résidus 262-274 du sous-domaine III) de la sous-unité n+1, qui interagit avec quatre régions situées sur le brin opposé, deux sur la sous-unité n (résidus 201-203 du sous-domaine IV et résidus 39-42 du sous-domaine II) et deux sur la sous-unité n+2 (résidus 170-174 du sous-domaine III et résidus 285-286 du sous-domaine III).
Contrairement à l'extrémité pointue (-), la boucle hydrophobe ne forme pas de liaison stable avec la boucle D du brin opposé, ce qui laisse disponible le site d'incorporation du monomère suivant et favorise l'élongation du filament.
Extrémité pointue (-)
L'extrémité pointue (pointed end), appelée aussi pointée, présente une organisation structurale différente et constitue le principal site de dissociation des sous-unités d'actine G ( dépolymérisation).
Les monomères terminaux y sont majoritairement sous forme d'actine G-ADP (Structural basis for the slow dynamics of the actin filament pointed end 2011).
1. La dernière sous-unité d'actine G adopte une rotation d'environ 12° par rapport au reste du filament, permettant l'établissement de contacts particuliers entre la boucle D (DNase I-binding loop) d'un monomère et la boucle hydrophobe du brin opposé.
2. Ces contacts ont deux conséquences.
- Ils inhibent l'incorporation d'un nouveau monomère d'actine G à l'extrémité pointue, car cette liaison doit être rompue avant que le monomère suivant puisse s'incorporer selon l'organisation canonique du filament.
- Ils ralentissent la dissociation de la sous-unité terminale, dont le départ nécessite également la rupture préalable de cette liaison.

Cette organisation asymétrique constitue le fondement :
- de la polymérisation des microfilaments,
- du renouvellement permanent des sous-unités ( treadmilling),
- de l'action directionnelle des protéines motrices de la famille des myosines,
- des interactions avec les protéines associées à l'actine (ABP ou Actin Binding Protein).
Polymérisation de l'actine
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction
cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation