


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Protéines de sectionnement
Vue d'ensemble et cofiline
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

Les protéines de sectionnement des microfilaments d'actine assurent leur renouvellement en contrôlant leur fragmentation et leur dépolymérisation, principalement sous l'action de la cofiline.
Vue d'ensemble des protéines de sectionnement
Les protéines de sectionnement constituent une famille de protéines de liaison à l'actine (ABP ou Actin Binding Proteins) qui fragmentent les microfilaments d'actine et remplissent deux fonctions complémentaires.
- D'une part, elles assurent la dépolymérisation du cytosquelette.
- D'autre part, en générant de nouvelles extrémités barbées (+) et pointues (-), elles favorisent la formation de nouveaux microfilaments d'actine et contribuent au remodelage rapide du réseau d'actine.
Les monomères d'actine G libérés lors de la dépolymérisation sont ensuite recyclés en actine G-ATP, principalement grâce à CAP1/CAP2, puis transférés à la profiline avant d'être réincorporés à l'extrémité barbée (+) de nouveaux microfilaments d'actine ( mécanisme d'action de CAP1/CAP2).
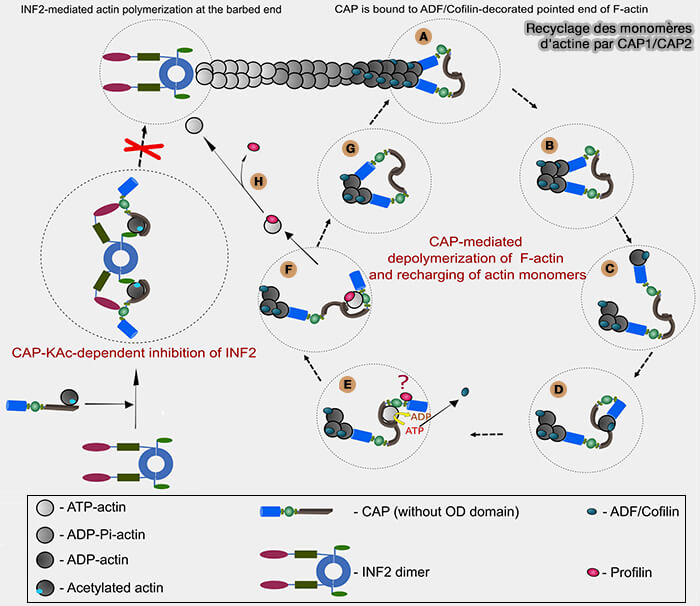
(Figure : vetopsy.fr d'après Rust et coll)
1. Le renouvellement permanent est particulièrement important dans les structures cellulaires très dynamiques, telles que les lamellipodes et les filopodes, où les nouvelles extrémités barbées (+) peuvent être reprises en charge par les formines et les protéines Ena/VASP, le complexe Arp2/3 assurant la nucléation de nouvelles branches contribuant au remodelage du réseau d'actine.
Si, in vitro, le raccourcissement est plus rapide à l'extrémité (+) qu'à l'extrémité pointue (-), in vivo, les protéines de coiffage ou la formine stabilisent généralement l'extrémité barbée (+), de sorte que la dépolymérisation s'effectue principalement à l'extrémité pointue (−).
2. Les deux principales familles de protéines de sectionnement des microfilaments d'actine sont :
Remarque : les myosines peuvent également contribuer au désassemblage des réseaux d'actine en générant des contraintes mécaniques suffisantes pour provoquer la rupture de certains microfilaments.
3. Les autres familles de protéines de liaison à l'actine comprennent :
- des protéines de séquestration qui séquestrent les monomères d'actine G et régulent leur disponibilité pour la polymérisation (thymosine β4, profiline, CAP1 et CAP2 (Cyclase-associated proteins), twinfiline, DNase I…),
- des protéines de nucléation qui initient la formation de nouveaux microfilaments (formines, complexe Arp2/3, protéines à domaines WH2 multiples ou tandem-monomer-binding nucleators…),
- des protéines d’élongation qui favorisent l’ajout de monomères d’actine G à l’extrémité (+) et accompagnent la croissance du microfilament (formines, Ena/VASP, …),
- des protéines de coiffage qui se fixent aux extrémités (+) ou (-) et contrôlent les échanges de monomères (CapZ, gelsoline, twinfiline, tropomoduline…),
- des protéines de stabilisation qui limitent la dépolymérisation et stabilisent certains réseaux d'actine (tropomyosines, cortactine…),
- des protéines de réticulation qui relient plusieurs microfilaments afin de former des faisceaux ou des réseaux tridimensionnels (plastines (fimbrines), fascines, villine, espine, α-actinine, filamine…),
- des protéines motrices, les myosines, qui utilisent les microfilaments d'actine comme rails moléculaires pour produire des forces et des mouvements cellulaires,
- des protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique, comme les protéines ERM (Ezrine, Radixine, Moésine), les spectrines et la dystrophine.
L'ankyrine participe également à ces complexes d'ancrage par son interaction avec les spectrines et diverses protéines membranaires, mais sans se lier directement aux microfilaments d'actine.
Remarque : certaines ABP sont dites multifonctionnelles car elles participent à plusieurs mécanismes.
Par exemple les formines, classées dans les protéines de nucléation, peuvent aussi participer au coiffage de l'extrémité barbée (+) et à l'élongation.
Famille des ADF/cofiline
La famille des ADF, également appelée famille AC, regroupe des protéines jouant un rôle majeur dans le remodelage des microfilaments d'actine (ADF/Cofilin: A Functional Node in Cell Biology 2010).

La cofiline 1, l'isoforme la mieux caractérisée à ce jour, constitue le principal régulateur du renouvellement des microfilaments d'actine et servira de modèle pour décrire les propriétés de cette famille de protéines.
1. Les mammifères possèdent trois membres de la famille ADF/cofiline (The ADF/cofilin family : actin-remodeling proteins 2002) :
- l'ADF ou destrine (DSTN), particulièrement exprimée dans les cellules épithéliales et certains autres tissus non musculaires,
- la cofiline 1 (CFL1), exprimée dans la plupart des tissus non musculaires,
- la cofiline 2 (CFL2), principalement exprimée dans les muscles striés.
2. L'ADF et la cofiline 1 présentent certaines différences (ADF/Cofilin: A Functional Node in Cell Biology 2010).
Structure des ADF/cofiline
Les protéines de la famille ADF/cofiline sont de petites protéines de 113 à 166 résidus selon les isoformes.
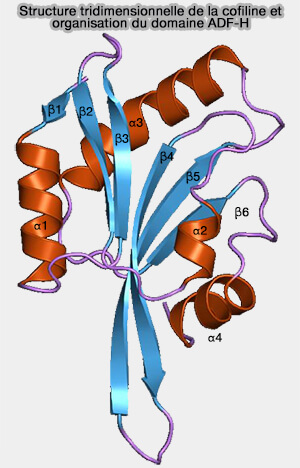
et organisation du domaine ADF-H
((Figure : vetopsy.fr )
1. Leur structure est fortement conservée et comporte cinq à six feuillets β (β sheet) entourés de quatre à cinq hélices α.
La cofiline 1, par exemple, est constituée de 166 acides aminés, de six feuillets β et de quatre hélices α (Solution structure of human cofilin: actin binding, pH sensitivity, and relation ship to actin-depolymerizing factor 2004).
La cofiline 1, par exemple, est constituée de 166 acides aminés, de six feuillets β et de quatre hélices α (Solution structure of human cofilin: actin binding, pH sensitivity, and relation ship to actin-depolymerizing factor 2004).
2. La quasi-totalité de cette protéine correspond à un domaine ADF-H (Actin-Depolymerizing Factor Homology), domaine structural conservé qui assure sa liaison à l'actine (Structure of the actin-depolymerizing factor homology domain in complex with actin 2008).
a. Le domaine ADF-H se fixe dans la fente située entre les sous-domaines 1 et 3 de l'actine (Structural basis for cofilin binding and actin filament disassembly 2018).
- Cette interaction, à laquelle contribue notamment sa longue hélice α centrale, induit des modifications conformationnelles qui fragilisent le microfilament et favorisent son sectionnement ( mécanisme d'action de la cofiline).
- Les études de cryo-EM ont montré que cette liaison met en jeu plusieurs interfaces de contact (G-site, F-site, Gi-site et Go-site), qui stabilisent la fixation de la cofiline sur le filament d'actine.
b. Cette région de l'actine est également reconnue par les domaines de la famille de la gelsoline, bien que leurs structures et leurs interactions moléculaires soient différentes.
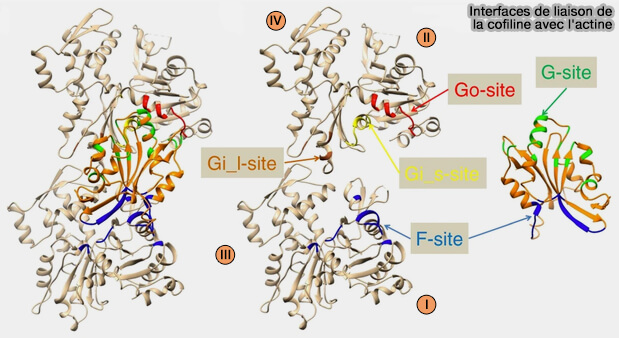
(Figure : vetopsy.fr d'après Tanaka et coll)
Remarque : ce domaine est partagé par plusieurs protéines associées à l'actine (ABP ou Actin Binding Protein), dont la twinfiline, qui en possède deux et intervient dans la séquestration des monomères d'actine G ainsi que dans la régulation des extrémité barbée (+), notamment leur coiffage et leur dépolymérisation.
En revanche, ce domaine n'est pas présent dans la gelsoline.
Mécanisme d'action de la cofiline
La cofiline 1 se lie aussi bien aux monomères d'actine G qu'aux microfilaments d'actine.
Le sectionnement et la dépolymérisation des microfilaments d'actine sont plus importants à l'extrémité pointue (-) qu'à l'extrémité barbée (+), en raison :
- de la présence des protéines de coiffage ou de la formine à l'extrémité barbée (+), qui limitent son accès à cette extrémité,
- de sa plus grande affinité pour les sous-unités d'actine G-ADP, prédominantes dans les régions anciennes des microfilaments et vers l'extrémité pointue (-) que pour les formes actine-ADP-Pi ou actine-ATP,
- de la libération retardée du phosphate inorganique (Pi), qui transforme progressivement l'actine-ADP-Pi en actine-ADP au cours du vieillissement du microfilament (incorporation des sous-unités d'actine-ATP et cycle nucléotidique).

Vous pouvez lire : Choreography of rapid actin filament disassembly by coronin, cofilin, and AIP1 (2025).
1. La cofiline se fixe sur les sous-unités d'actine par son domaine ADF-H, qui reconnaît une région située entre les sous-domaines 1 et 3 de l'actine.
- La présence de phosphate inorganique (Pi) dans la fente nucléotidique diminue l'affinité de la cofiline pour les sous-unités d'actine et retarde la formation de domaines continus de cofiline le long du microfilament.
- La cofiline accélère la libération du Pi, favorisant ainsi sa fixation coopérative sur les régions riches en actine-ADP (The effect of two actin depolymerizing factors (ADF/cofilins) on actin filament turnover 1998).
En outre, la coronine favorise la fixation coopérative de la cofiline en accélérant la libération du phosphate inorganique (Pi) et en modifiant localement la conformation du microfilament d'actine ( déramification des filaments ramifiés).
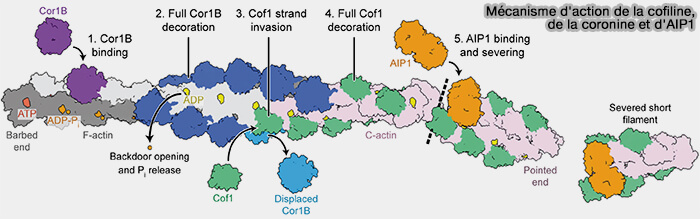
(Figure : vetopsy.fr d'après Ngo et coll)
2. La fixation de la cofiline induit des modifications de la conformation des sous-unités d'actine et augmente la torsion locale du microfilament, ce qui rend le microfilament plus sensible au sectionnement (Cofilin changes the twist of F-actin 1997).
Les régions liées à la cofiline adoptent ainsi une conformation différente de celle des régions non décorées, ce qui crée une discontinuité mécanique et fragilise les interactions entre les sous-unités d'actine.
3. Le sectionnement, qui survient préférentiellement à l'interface entre ces deux régions, ne fragmente pas le microfilament en monomères, mais le divise en deux fragments de longueur variable, chacun possédant une extrémité barbée (+) et une extrémité pointue (-).
Selon leur longueur, leur état de coiffage et le contexte cellulaire, ces fragments peuvent poursuivre leur dépolymérisation à partir de leur extrémité pointue (-), être sectionnés à nouveau ou servir de support à un nouveau cycle de remodelage (Synergy between actin depolymerizing factor/cofilin and profilin in increasing actin filament turnover 1998).
a. La dépolymérisation se poursuit préférentiellement à l'extrémité pointue (-), libérant progressivement des monomères d'actine G-ADP.
- Une partie des monomères d'actine G-ADP reste associée à la cofiline.
- CAP1/2 (Cyclase-associated protein), Srv2 chez les levures, dissocie ce complexe actine G-ADP-cofiline, permettant le recyclage de la cofiline ainsi que l'échange de l'ADP contre de l'ATP sur les monomères d'actine avant leur réincorporation dans de nouveaux microfilaments ( mécanisme d'action de CAP1/CAP2).
b. Les nouvelles extrémités barbées (+) créées par le sectionnement peuvent ensuite :
- être allongées par les formines,
- servir de support à la formation de réseaux ramifiés par le complexe Arp2/3,
- être coiffées par des protéines de coiffage.
Remarque : dans les réseaux de microfilaments d'actine ramifiés, la cofiline ne participe pas uniquement au sectionnement et à la dépolymérisation des filaments.
Elle favorise également la déramification en contribuant à la dissociation des branches nucléées par le complexe Arp2/3, en coopération avec le GMF, la coronine et AIP1 (déramification des microfilaments ramifiés)

Ainsi, le sectionnement par la cofiline ne se limite pas au démantèlement des microfilaments d'actine, mais participe à leur renouvellement et au remodelage rapide du cytosquelette.
AIP1 : coopération avec la cofiline
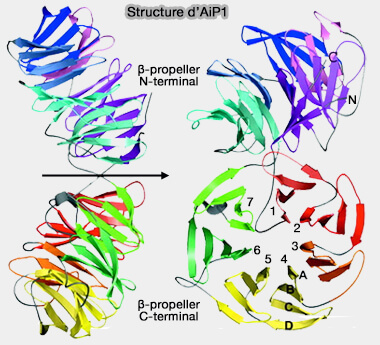
(Figure : vetopsy.fr d'après Voegtli et coll)
1. Si la cofiline constitue la principale protéine de sectionnement des microfilaments d'actine, AIP1 (Actin-interacting protein 1) agit en étroite coopération avec elle pour accélérer leur démantèlement (An Order of Magnitude Faster AIP1-Associated Actin Disruption than Nucleation by the Arp2/3 Complex in Lamellipodia 2009 et Loss of Aip1 reveals a role in maintaining the actin monomer pool and an in vivo oligomer assembly pathway 2010).
2. AIP1 est une protéine qui comprend deux domaines β-propeller, constitués chacun de sept répétitions WD ou WD-repeat (The Structure of Aip1p, a WD Repeat Protein That Regulates Cofilin-mediated Actin Depolymerization 2003).
- Elle se fixe préférentiellement sur les microfilaments décorés par la cofiline, où elle accélère leur désassemblage (Choreography of rapid actin filament disassembly by coronin, cofilin, and AIP1 2025)
- Elle pourrait également coiffer transitoirement les nouvelles extrémités barbées (+) générées par le sectionnement induit par la cofiline, limitant ainsi leur réélongation immédiate et favorisant le avorisant un démantèlement rapide (" burst ") des réseaux d'actine ((Rapid actin monomer–insensitive depolymerization of Listeria actin comet tails by cofilin, coronin, and Aip1 2006 et Actin disassembly by cofilin, coronin, and Aip1 occurs in bursts and is inhibited by barbed-end cappers 2008)
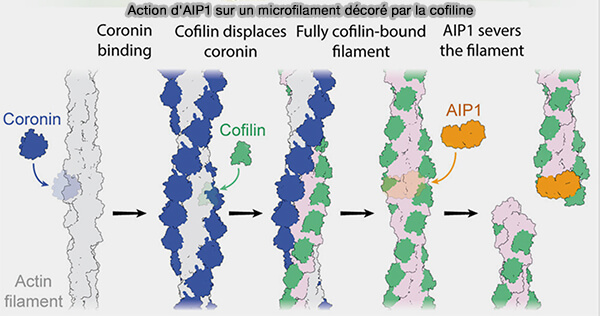
(Figure : vetopsy.fr d'après Oosterheert et coll)
Régulation de la cofiline
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation