


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Protéines de liaison avec la membrane
Vue d'ensemble et
protéines ERM
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

Les protéines de liaison membranaire des microfilaments d'actine assurent le couplage entre la membrane plasmique et le cytosquelette d'actine, notamment grâce aux protéines ERM.
Vue d'ensemble des protéines de liaison membranaire
des microfilaments d'actine
Les microfilaments d'actine forment sous la membrane plasmique un réseau cortical dynamique impliqué dans le maintien de la forme cellulaire, l'adhérence, la migration, les microvillosités et de nombreuses voies de signalisation.
1. Plusieurs protéines spécialisées assurent l'ancrage et l'organisation de ce réseau en le reliant à des protéines transmembranaires ou à certains complexes membranaires, tout en participant à la transmission des forces mécaniques.
a. Certaines sont des protéines de liaison à l'actine (ABP ou Actin Binding Proteins) :
- les protéines ERM (ezrine, radixine et moésine), qui établissent un lien réversible entre les microfilaments d'actine et diverses protéines membranaires du cortex cellulaire,
- les spectrines, qui forment avec l'actine un réseau sous-membranaire assurant le maintien de la forme cellulaire et la résistance mécanique de la membrane plasmique,
- la dystrophine et les protéines apparentées, qui relient les microfilaments d'actine au complexe dystrophine-glycoprotéines et contribuent à la stabilité mécanique de certaines cellules, notamment musculaires.
b. L'ankyrine L'ankyrine joue un rôle majeur dans ces complexes d'ancrage en reliant les spectrines à diverses protéines membranaires, sans toutefois se lier directement aux microfilaments d'actine.
2. Les autres familles de protéines de liaison à l'actine comprennent :
- des protéines de séquestration qui séquestrent les monomères d'actine G et régulent leur disponibilité pour la polymérisation (thymosine β4, profiline, CAP1 et CAP2 (Cyclase-associated proteins), twinfiline, DNase I…),
- des protéines de nucléation qui initient la formation de nouveaux microfilaments (formines, complexe Arp2/3, protéines à domaines WH2 multiples ou tandem-monomer-binding nucleators…),
- des protéines d’élongation qui favorisent l’ajout de monomères d’actine G à l’extrémité (+) et accompagnent la croissance du microfilament (formines, Ena/VASP, …),
- des protéines de coiffage qui se fixent aux extrémités (+) ou (-) et contrôlent les échanges de monomères (CapZ, gelsoline, twinfiline, tropomoduline…),
- des protéines de sectionnement et de dépolymérisation qui fragmentent les microfilaments et favorisent leur renouvellement (cofiline, gelsoline…),
- des protéines de stabilisation qui limitent la dépolymérisation et stabilisent certains réseaux d'actine (tropomyosines, cortactine…),
- des protéines de réticulation qui relient plusieurs microfilaments afin de former des faisceaux ou des réseaux tridimensionnels (plastines (fimbrines), fascines, villine, espine, α-actinine, filamine…),
- des protéines motrices, les myosines, qui utilisent les microfilaments d'actine comme rails moléculaires pour produire des forces et des mouvements cellulaires.
Remarque : certaines ABP sont dites multifonctionnelles car elles participent à plusieurs mécanismes.
Par exemple les formines, classées dans les protéines de nucléation, peuvent aussi participer au coiffage de l'extrémité barbée (+) et à l'élongation.
Protéines ERM
Les protéines ERM (Ezrine, Radixine, Moésine) constituent une famille de protéines de liaison à l'actine spécialisée dans le couplage entre la membrane plasmique et les microfilaments d'actine du cortex cellulaire (Organizing the Cell Cortex: The role of ERM proteins 2010).
Présentes chez la plupart des vertébrés, elles jouent un rôle essentiel dans l'organisation de la surface cellulaire en assurant l'ancrage de nombreuses protéines membranaires au cytosquelette d'actine.
Ces protéines possèdent une organisation structurale similaire et un mécanisme d'activation commun, et bien que leurs fonctions soient largement similaires, elles se distinguent par leur distribution tissulaire.
- L'ezrine (EZR) est particulièrement abondante dans les cellules épithéliales et les microvillosités.
- La radixine (RDX) joue notamment un rôle important dans le foie et l'oreille interne (
 stéréocils et cytosquelette d'actine).
- La moésine (MSN) est surtout exprimée dans les cellules immunitaires, hématopoïétiques et endothéliales.
Structure des protéines ERM
1. Les protéines ERM possèdent une organisation modulaire très conservée composée de trois régions principales (Ezrin Mediates Invasion and Metastasis in Tumorigenesis: A Review 2020).
a. Le domaine N-terminal FERM (Four-point-one, i.e. protéine 4.1, Ezrin, Radixin, Moesin), constitué d'environ 300 acides aminés, comprend trois sous-domaines, F1, F2 et F3, organisés en une structure compacte en forme de trèfle, et constitue la principale interface entre les protéines ERM et la membrane cellulaire, responsable de l'interaction avec :
- de nombreuses protéines membranaires,
- certains phosphoinositides de la membrane plasmique, notamment PI(4,5)P2 ou PIP2.
Remarque : la merline, codée par le gène NF2, est une protéine apparentée aux protéines ERM qui possède également un domaine FERM N-terminal. Contrairement aux protéines ERM classiques, elle intervient notamment dans le contrôle de la prolifération cellulaire et de plusieurs voies de signalisation.
b. La longue région centrale α-hélicoïdale agit comme un bras flexible reliant les domaines N- et C-terminaux.
Cette région contribue aux changements conformationnels qui contrôlent l'activité des protéines ERM.
c. Le domaine C-terminal de liaison à l'actine, appelé C-ERMAD (C-terminal ERM Association Domain) contient le principal site de liaison aux microfilaments d'actine.
- Contrairement aux domaines ABD classiques constitués de deux domaines CH (Calponin Homology), correspond à une région C-terminale riche en hélices α dont les derniers résidus participent directement à la liaison aux microfilaments d'actine.
- Il interagit également avec le domaine FERM dans la conformation inactive des protéines ERM, masquant les sites de liaison aux partenaires moléculaires et maintenant ainsi la protéine dans un état autoinhibé.
Le C-ERMAD contient enfin un résidu thréonine conservé dont la phosphorylation participe à l'activation des protéines ERM en favorisant l'ouverture de la molécule.
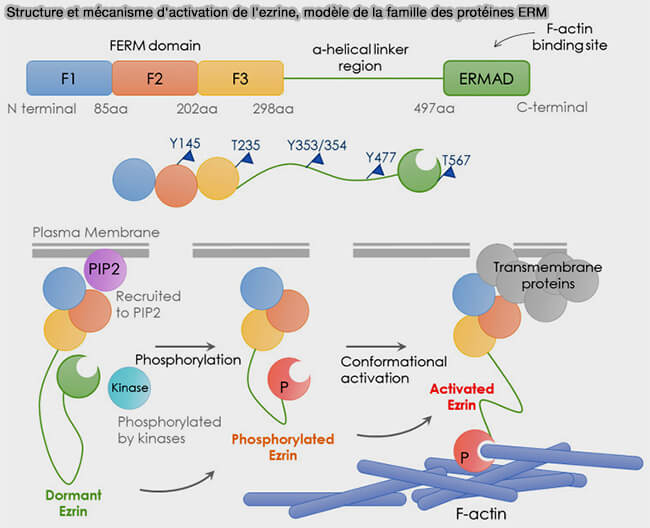
(Figure : vetopsy.fr d'après Song et coll)
2. Les protéines ERM alternent entre une conformation fermée inactive et une conformation ouverte active (Two Sides of the Coin: Ezrin/Radixin/Moesin and Merlin Control Membrane Structure and Contact Inhibition 2019)
a. À l'état inactif, dans la configuration fermée, une interaction intramoléculaire entre les domaines N-terminal FERM et C-ERMAD masque les sites de liaison à la membrane plasmique et aux microfilaments d'actine.
b. L'activation débute par la liaison du PI(4,5)P2 ou PIP2 au domaine FERM (Ezrin activation by LOK phosphorylation involves a PIP2-dependent wedge mechanism 2017).
- Cette interaction déstabilise la conformation fermée et favorise l'exposition des sites de liaison à la membrane plasmique et aux microfilaments d'actine.
- Elle est ensuite stabilisée par la phosphorylation d'un résidu thréonine conservé situé dans le domaine C-terminal (Thr567 de l'ezrine, Thr564 de la radixine et Thr558 de la moésine).
c. Les protéines ERM activées peuvent alors se lier simultanément à des protéines membranaires par leur domaine FERM et aux microfilaments d'actine par leur domaine C-terminal, assurant ainsi le couplage entre la membrane plasmique et le cytosquelette cortical.
Fonctions des protéines ERM
Les protéines ERM exercent de multiples fonctions en assurant le couplage entre la membrane plasmique et le cytosquelette d'actine ainsi que l'organisation de domaines spécialisés de la membrane plasmique.
- Dans le cortex cellulaire, les protéines ERM assurent l'ancrage du réseau cortical d'actine sous la membrane plasmique et contribuent au maintien de la forme cellulaire.
- Dans les microvillosités, elles relient les faisceaux de microfilaments d'actine à la membrane plasmique et participent à leur stabilité.
- Dans la polarité cellulaire, elles contribuent à l'organisation de domaines membranaires spécialisés et à la répartition asymétrique de nombreuses protéines membranaires.
- Dans l'adhérence et la migration cellulaire, elles participent au remodelage du cortex d'actine nécessaire aux changements de forme et aux déplacements cellulaires.
- Dans les voies de signalisation, elles contribuent à l'organisation spatiale de diverses protéines membranaires et molécules de signalisation.
Autres protéines de liaison à l'actine : spectrine, dystrophine
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation