


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Protéines de stabilisation des filaments ramifiés
Cortactine
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

La cortactine est une protéine de stabilisation des microfilaments d'actine qui se fixe aux réseaux ramifiés dépendants du complexe Arp2/3, dont elle favorise la stabilité, le maintien et la dynamique au sein des lamellipodes et des invadopodes.
La cortactine, par ses interactions avec l'actine F, le complexe Arp2/3 et de nombreuses protéines de signalisation, contribue au maintien des ramifications et à l'organisation de structures cellulaires dynamiques impliquées dans la migration, l'endocytose et le remodelage membranaire.
Les tropomyosines, elles, stabilisent principalement les réseaux linéaires de microfilaments d'actine.
Toutefois, comme de protéines associées à l'actine (ABP ou Actin Binding Protein), elle exerce également d'autres fonctions importantes ( fonctions de la cortactine)
Structure de le cortactine
La cortactine, d'environ 550 résidus, est constituée de plusieurs domaines fonctionnels. qui présentent une organisation flexible ou intrinsèquement désordonnée (Cortactin in cancer cell migration and invasion 2017).
Les données structurales disponibles concernent principalement certains domaines isolés ou la cortactine engagée dans des complexes avec l'actine et le complexe Arp2/3.
1. Le domaine N-terminal acide (NTA, N-terminal acidic domain) contient un motif DDW conservé (résidus 20-22) qui interagit avec le complexe Arp2/3 et participe à la stabilisation des ramifications des microfilaments d'actine.
Cette région est homologue à la région acide (A) du domaine VCA des protéines de la famille WASP.
2. Le domaine central (résidus 85-326) constitué de 6,5 répétitions en tandem (TR, tandem repeats) d'environ 37 acides aminés qui assurent la liaison à l'actine F.
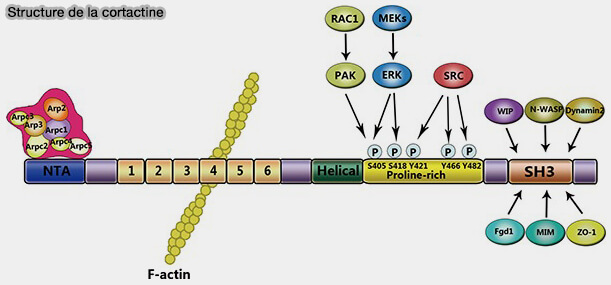
(Figure : vetopsy.fr d'après Yin et coll)
3. La région hélicoïdale (H), riche en en hélice α, est impliquée dans l'organisation structurale de la protéine et contenant des sites de clivage par les calpaïne, protéases calcium-dépendantes.
Ces enzymes, responsables de la protéolyse neutre calcium-dépendante, possèdent un domaine calmodulin-like qui présente des mains EF (EF-hand) capables de lier les ions calcium,
4. Le domaine riche en proline (PRD), résidus 327-494, contient de nombreux sites de phosphorylation ciblés par diverses tyrosine kinases et sérine/thréonine kinase, en particulier sur par le plus souvent phosphorylation les Tyr421, Tyr466 et Tyr482.
5. Le domaine SH3 C-terminal (résidus 495-542) interagit avec de nombreux partenaires, notamment N-WASP, WIP et la dynamine.
Remarque : l'Abp1 (Actin-binding protein 1) de la levure présente plusieurs similitudes structurales et fonctionnelles avec la cortactine et est généralement considérée comme son principal homologue évolutif.
Mode d'action de le cortactine
La cortactine est principalement localisée dans le cytoplasme, mais se concentre rapidement au niveau du cortex cellulaire, des lamellipodes et d'autres structures riches en actine en réponse à différents signaux extracellulaires impliquant notamment les petites GTPases de la famille Rho, dont Rac1 (Cortactin stabilizes actin branches by bridging activated Arp2/3 to its nucleated actin filament 2018).

Pour approfondir ce sujet, vous pouvez consulter : Cortactin stabilizes actin branches by bridging activated Arp2/3 to its nucleated actin filament (2024).
Inhibition de la dépolymérisation et stabilisation de l'actine
La cortactine inhibe la dépolymérisation et stabilise l'actine par plusieurs processus.
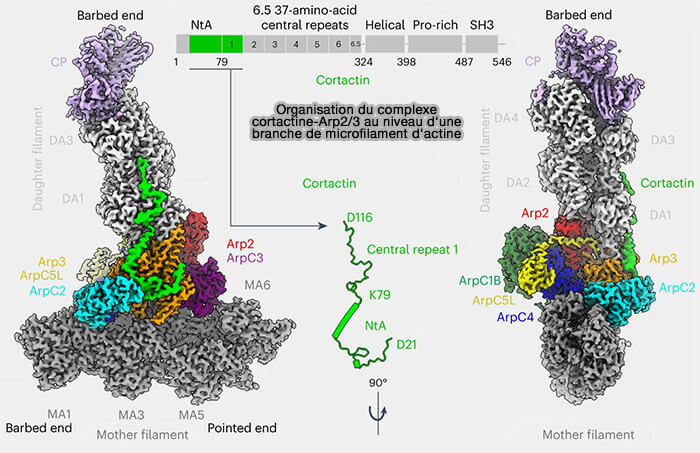
(Figure : vetopsy.fr d'après Liu et coll)
1. La cortactine se lie au complexe Arp2/3 par son domaine NTA et à l'actine F par ses répétitions en tandem.
- Cette double interaction stabilise les jonctions de branchement et augmente la persistance des réseaux ramifiés (Cortactin promotes and stabilizes Arp2/3-induced actin filament network formation 2001).
- Bien que la cortactine puisse favoriser l'activité du complexe Arp2/3 en fonctionnant comme un NPF (Nucleation-Promoting Factor) de type II, son rôle principal semble être la stabilisation et la maturation des ramifications plutôt que leur nucléation initiale.
2. Les analyses structurales récentes montrent que les six répétitions en tandem et la demi-répétition terminale ne se lient pas chacune à une seule sous-unité d'actine.
a. Elles formeraient ensemble une surface continue d'interaction qui s'étend le long du filament d'actine et contribuent à la stabilisation des ramifications dépendantes du complexe Arp2/3 (Cortactin stabilizes actin branches by bridging activated Arp2/3 to its nucleated actin filament 2024).
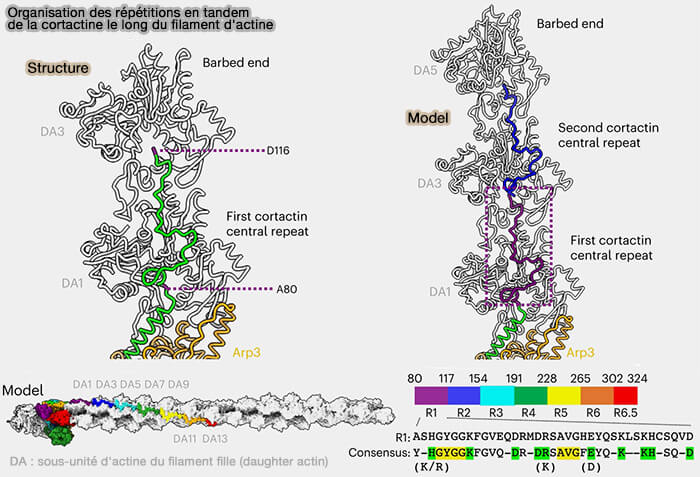
(Figure : vetopsy.fr d'après Liu et coll)
b. La cortactine modifie également les contacts latéraux et longitudinaux entre les sous-unités d'actine au sein des microfilaments d'actine, ce qui pourrait contribuer à la stabilisation des branches et favoriser localement la formation de nouvelles ramifications (The Actin-binding Domain of Cortactin is Dynamic and Unstructured and Affects Lateral and Longitudinal Contacts in F-actin 2009).
- En renforçant la stabilité structurale des ramifications nouvellement formées, la cortactine favorise la maturation et le maintien des réseaux ramifiés dépendants du complexe Arp2/3.
- Cette activité contribue à la persistance de réseaux denses d'actine où la stabilité des ramifications est nécessaire à la génération de forces mécaniques et au remodelage membranaire comme dans les lamellipodes, les réseaux corticaux et les invadopodes.
3. La cortactine entre aussi en concurrence fonctionnelle avec la cofiline, protéine de fragmentation des microfilaments d'actine, pour se lier à certaines régions du filament ( cf plus bas).
- Alors que la cofiline se fixe préférentiellement sur les régions enrichies en actine-ADP des microfilaments d'actine plus anciens, la cortactine est principalement associée aux ramifications récemment formées et enrichies en complexe Arp2/3.
- Cette différence de localisation contribue au maintien des ramifications nouvellement formées et à la stabilité des réseaux ramifiés.
Cortactine comme protéine d'échafaudage (scaffold)
1. Le domaine SH3 C-terminal fonctionne comme une protéine d'échafaudage (scaffold protein) capable de recruter de nombreux partenaires, possédant un domaine riche en proline (PRD, impliqués dans (Cortactin: The Gray Eminence of the Cytoskeleton 2006 et Cortactin: coupling membrane dynamics to cortical actin assembly 2001) :
- les voies de signalisation,
- le trafic vésiculaire,
- la régulation du cytosquelette d'actine.
Une liste des principaux partenaires de la cortactine est disponible dans : Cortactin in cancer cell migration and invasion (2017).
En coordonnant le recrutement et l'organisation de ces protéines au voisinage des réseaux ramifiés d'actine, la cortactine assure l'intégration entre les remaniements du cytosquelette, en interagissant notamment avec :
- les NPF (Nucleation-Promoting Factor), tels que les membres de la famille WASP, qui recrutent et activent le complexe Arp2/3 afin de développer les réseaux ramifiés d'actine,
- la dynamine, impliquée dans l'internalisation et la séparation des vésicules d'endocytose de la membrane plasmique ( partenaires de la dynamine)
- HIP1R (Huntingtin-interacting protein 1-related), qui participe au couplage entre les membranes et le cytosquelette d'actine et peut limiter localement l'élongation des filaments.
2. Les invadopodes illustrent particulièrement bien cette fonction d'échafaudage (Cortactin regulates cofilin and N-WASp activities to control the stages of invadopodium assembly and maturation 2009).
Dans ces structures spécialisées, la cortactine coordonne le recrutement de nombreuses protéines impliquées dans le remodelage du cytosquelette d'actine, notamment Nck1, N-WASP, le complexe Arp2/3 et la cofiline.
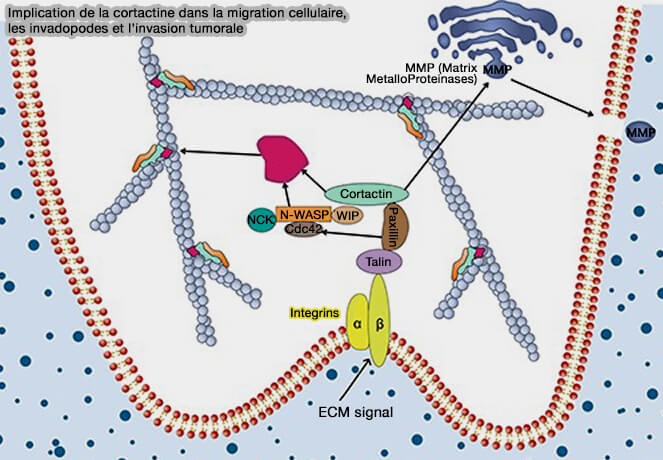
(Figure : vetopsy.fr d'après Yin et coll)
a. À l'état non phosphorylé, la cortactine peut s'associer à la cofiline au sein d'un complexe régulateur qui limite localement son activité de fragmentation des microfilaments d'actine et contribue à la stabilisation et à la maturation des invadopodes.
b. La phosphorylation des résidus Tyr421, Tyr466 et Tyr482 de la cortactine par Src a deux conséquences
- Elle favorise l'activation locale de la cofiline, qui fragmente les microfilaments d'actine génère de nouvelles extrémités barbées (+), lesquelles servent de support à une nouvelle polymérisation de l'actine.
- Les résidus tyrosine phosphorylés constituent des sites de liaison pour l'adaptateur Nck1, dont le recrutement favorise l'activation de N-WASP puis du complexe Arp2/3.
c. L'association de ces mécanismes stimule la formation de nouvelles ramifications et contribue à l'expansion des invadopodes.
Cortactine et PI(3,5)P2
PI(3,5)P2 est un phospholipide membranaire localisé dans les endosome tardifs et les lysosomes.
- La cortactine interagit avec le PI(3,5)P2 par l'intermédiaire de ses répétitions en tandem (TR), qui constituent également sa principale région de liaison à l'actine F.
- PI(3,5)P2 entre en concurrence avec l'actine pour se lier à la cortactine, conduisant à l'inhibition de la nucléation et de la stabilisation de l'actine ramifiée médiée par la cortactine.
1. L'inhibition de la synthèse de PI(3,5)P2 dans les cellules entraîne une accumulation et une stabilisation de l'actine sur les endosomes tardifs, phénomène qui disparaît lors de l'épuisement de la cortactine (PI(3,5)P2 controls endosomal branched actin dynamics by regulating cortactin–actin interactions 2015).
- Ces résultats suggèrent que le PI(3,5)P2 favorise le détachement de la cortactine des réseaux d'actine associés aux membranes endosomales, limitant ainsi l'assemblage et la stabilisation des réseaux ramifiés dépendants de la cortactine au niveau des endosomes tardifs.
- Les cycles de conversion entre PI(3,4,5)P3 ou PIP3 et PI(3,5)P2 permettraient ainsi de réguler rapidement la dynamique des réseaux d'actine sur les membranes endosomales et les événements de trafic vésiculaire qui en découlent, i.e. courbure membranaire et transport des vésicules.
2. Ce processus pourrait contribuer à la séparation retardée des mélanosomes et des lysosomes dans le modèle kiss-and-run (The PIKfyve complex regulates the early melanosome homeostasis required for physiological amyloid formation 2019).
Fonctions de la cortactine
Depuis sa découverte au début des années 1990, la cortactine est considérée comme une protéine de signalisation-clé dans de nombreux processus cellulaires comme :
- l'adhérence cellulaire,
- la migration cellulaire, et la formation de protrusions cellulaires telles que les lamellipodes,
- l'endocytose médiée par la clathrine (Cortactin Is a Component of Clathrin-Coated Pits and Participates in Receptor-Mediated Endocytosis 2003),
Au cours de l'endocytose, la cortactine assure notamment un couplage fonctionnel entre la dynamine, impliquée dans la séparation des vésicules en formation, et le complexe Arp2/3 responsable de l'assemblage des réseaux ramifiés d'actine.
- la maturation des endosomes tardifs et des lysosomes,
- la dynamique de l'actine au niveau des endosomes ( trafic des endosomes par le cytosquelette d'actine),
- le transport rétrograde vers l'appareil de Golgi,
- la formation et stabilisation des épines dendritiques, les densités postsynaptiques (PSD) en face des zones de libération du glutamate,
- l'invasion tumorale et la formation d'invadopodes (Cortactin Branches Out: Roles in Regulating Protrusive Actin Dynamics 2008).
tretour vers les protéines de stabilisation
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation