Le complexe Arp2/3 est le principal nucléateur des réseaux ramifiés de microfilaments d'actine, indispensables au remodelage dynamique du cytosquelette.
Le complexe ARP2/3 est le seul complexe qui peut générer des réseaux d'actine ramifiés, une architecture qui joue un rôle clé dans des processus mobiles.
Protéines de nucléation de l'actine
(Figure : vetopsy.fr)
celle des formines, responsables de la nucléation et de l'élongation des longs microfilaments d'actine linéaires (fibres de stress, anneaux contractiles…),,
ARP2 et ARP3 constituent le cœur catalytique du complexe,
ARPC1 à ARPC5 constituent des protéines d'échafaudage qui stabilisent le complexe et maintiennent ARP2 et ARP3 dans la conformation nécessaire aux interactions avec le microfilament mère (assemblage des microfilaments d'actine).
ARP (Actin Related Protein ) 2-3
Les protéines ARP2 (Actin-Related Protein 2) et ARP3 présentent une forte homologie structurale avec l'actine ( structure de l'actine).
Après activation du complexe Arp2/3, elles se rapprochent pour former un hétérodimère qui mime les deux premières sous-unités d'un microfilament d'actine et constitue le site de nucléation d'un nouveau microfilament.
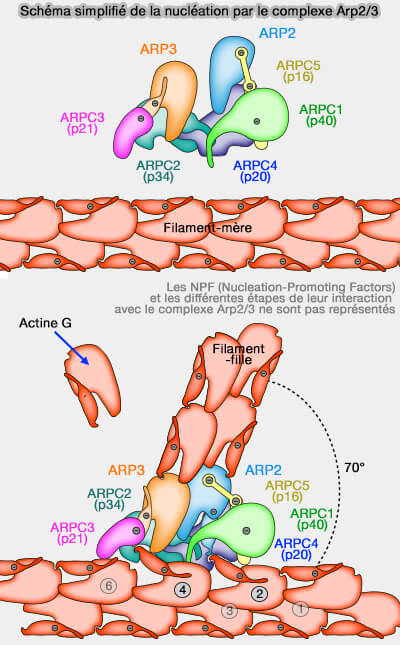
1. Le complexe Arp2/3 branche ensuite un microfilament d'actine " fille " selon un angle d'environ 70° sur un microfilament d'actine " mère ".
a. Ce mécanisme, appelé nucléation dendritique, repose sur l'ancrage latéral du complexe Arp2/3 au microfilament d'actine mère par l'intermédiaire de plusieurs de ses sous-unités, tandis que le dimère ARP2-ARP3 constitue la base du nouveau microfilament (assemblage des microfilaments d'actine).
Remarque : la formine, autre protéine de nucléation, ne produit que des filaments linéaires.
b. La ramification est autocatalytique et les microfilaments d'actine nouvellement formés peuvent à leur tour servir de microfilaments mères pour la formation de nouvelles ramifications.
Cinq autres sous-unités, désignées ARPC (Arp Complex), assurent l'organisation structurale du complexe Arp2/3, participent à son activation et contribuent à son interaction avec le microfilament d'actine mère.
2. ARPC2 (p34) et ARPC4 (p20) forment le cœur structural du complexe et assurent principalement son ancrage latéral au microfilament d'actine mère lors de la nucléation dendritique.
3. ARPC3 (p21) contribue à la stabilisation du complexe activé et participe également aux interactions avec le microfilament d'actine mère.
4. ARPC5 (p16) est impliquée dans la régulation de l'activité du complexe et dans sa stabilisation après activation.
Assemblage des microfilaments d'actine
La nucléation des réseaux ramifiés de microfilaments d'actine résulte d'une succession d'étapes coordonnées impliquant :
CapZ pourrait également favoriser indirectement l'activation du complexe Arp2/3 par un mécanisme de barbed end interference, sans modifier la fixation latérale du complexe sur le microfilament d'actine mère ( rôles de Capz).
a. Cette interaction met en jeu cinq monomères d'actine G du microfilament mère (M1 à M4 et M6), qui établissent des contacts avec les sept sous-unités du complexe Arp2/3.
Schéma simplifié de la nucléation par le complexe Arp2/3
(Figure : vetopsy.fr d'après Rouiller et Volkman)
Les sous-unités M2 et M4 contribuent principalement à cette liaison avec les différentes sous-unités du complexe, à l'exception d'Arp3 et leur interaction induit des modifications conformationnelles du microfilament mère qui stabilisent le complexe Arp2/3.
La distorsion du microfilament mère crée une rainure occupée par les hélices C-terminales d'ARPC2 et d'ARPC4, assurant l'ancrage latéral du complexe.
b. Au cours de cette réorganisation, ARP3 conserve ses interactions avec ARPC2 et ARPC4, restées ancrées au microfilament mère.
Cette stabilité permet à ARP2 de se rapprocher progressivement d'ARP3 afin de former le site de nucléation du futur microfilament d'actine.
c. La première sous-unité d'actine du microfilament fille interagit avec l'extrémité barbée d'ARP3 et la face latérale d'ARP2.
Cette liaison masque le site de fixation de la tropomyosine, une protéine de stabilisation des microfilaments d'actine, expliquant ainsi l'antagonisme entre la tropomyosine et le complexe Arp2/3 au niveau des points de ramification.
2. D'autres sous-unités ARPC interviennent également dans ce mécanisme.
ARPC3 forme un pont entre les sous-unités M2 et M4 du microfilament mère, favorisant la conformation ouverte de M4 et la conformation fermée d'ARP3.
ARPC5 établit des contacts plus limités avec M2 et s'enroule autour d'ARP2, contribuant à son maintien au sein du complexe lors des changements de conformation nécessaires à la liaison de la deuxième sous-unité d'actine du microfilament fille.
Formation du microfilament fille
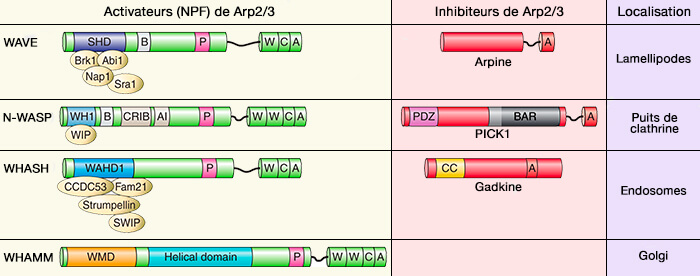
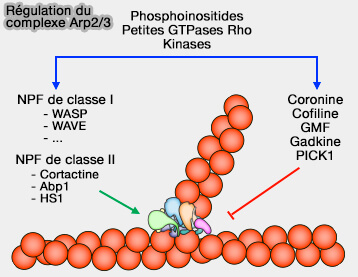
Le complexe Arp2/3 est intrinsèquement peu actif et nécessite l'intervention d'un NPF (Nucleation-Promoting Factor) pour acquérir sa conformation active.
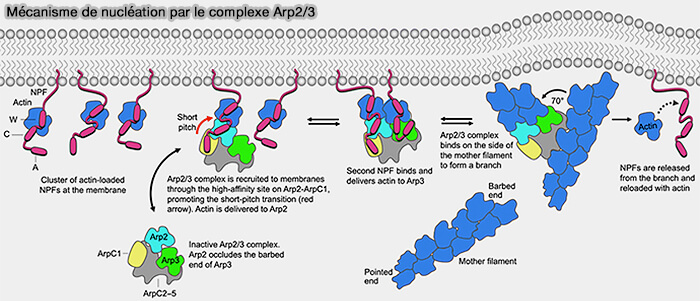
La liaison du domaine CA des NPF (Nucleation-Promoting Factor) au complexe Arp2/3 induit des changements conformationnels qui rapprochent ARP2 et ARP3, tandis que leur domaine WH2 recrute un ou plusieurs monomères d'actine G.
a. Son interaction avec ARPC5 contribue à maintenir le complexe Arp2/3 dans un état inactif en maintenant ARP2 et ARP3 éloignées l'une de l'autre, jusqu'à ce que les NPF déclenchent les changements de conformation nécessaires à son activation.
ARPC1 possède une extension qui se lie au domaine VCA des NPF.
Ce site d'ancrage participerait également au recrutement et au transfert des premiers monomères d'actine G vers le complexe Arp2/3.
Mécanisme de nucléation par le complexe Arp2/3
(Figure : vetopsy.fr d'après Zimmet et coll)
2. Le complexe Arp2/3 activé constitue un pseudo-dimère d'actine sur lequel viennent se fixer les premières sous-unités d'actine G apportées par les NPF. Cette étape initie l'élongation du microfilament fille.
Polymérisation de l'actine
suite à des forces de pression
(Figure : vetopsy.fr)
le premier site sur l'ARP3 (ce qui était le cas classique),
le second sur l'ARP2 et l'ARPC1.
b. Deux scénarios sont alors proposés.
Le complexe Arp2/3, activé par un premier NPF, se fixe sur le microfilament mère, tandis qu'un second NPF, porteur d'un monomère d'actine G, présente celui-ci au pseudo-dimère formé par ARP2 et ARP3.
Le complexe Arp2/3 fixe simultanément le NPF et le monomère d'actine G avant son ancrage au microfilament mère.
Remarque : la fixation du complexe Arp2/3 serait favorisée sur les faces convexes plutôt que sur les faces concaves des microfilaments, ce qui contribuerait à limiter ces contraintes et à rigidifier les réseaux ramifiés (Actin filament curvature biases branching direction 2012).
Régulation du complexe Aarp2/3
Le complexe Arp2/3 est soumis à une régulation positive et négative qui contrôle la formation, la stabilité et le renouvellement des réseaux de microfilaments d'actine ramifiés.
b. PICK1 (protein interacting with C kinase 1) est une protéine d'échafaudage possédant un domaine PDZ et un domaine BAR.
Elle se lie au complexe Arp2/3 et en inhibe l'activité en limitant son activation par les NPF (Nucleation-Promoting Factor), ce qui réduit la nucléation et la polymérisation des réseaux ramifiés de microfilaments d'actine.
Cette régulation participe notamment au remodelage du cytosquelette dans les cellules neuronales, où elle intervient dans la morphogenèse et la plasticité des épines dendritiques.
3. La déramification et le recyclage des réseaux ramifiés, autre régulation négative, font intervenir ( déramification des microfilaments) :
Les réseaux ramifiés de microfilaments d'actine générés par le complexe Arp2/3 sont indispensables à de nombreux processus cellulaires nécessitant un remodelage rapide du cytosquelette.
certains mécanismes de défense cellulaire, notamment la migration des cellules immunitaires, la formation des synapses immunologiques, la phagocytose des agents pathogènes par les macrophages et les neutrophiles,
la morphogenèse cellulaire et tissulaire au cours du développement embryonnaire.
Remarque : les anomalies du complexe Arp2/3 ou de ses protéines régulatrices perturbent l'organisation des réseaux ramifiés de microfilaments d'actine.
Elles sont impliquées dans plusieurs processus pathologiques, notamment certains déficits immunitaires, des anomalies du développement, des troubles de la migration cellulaire et la progression de certains cancers (The Arp2/3 Regulatory System and Its Deregulation in Cancer 2018).
Les protéines à domaines WH2 multiples (tandem-monomer-binding nucleators) constituent la troisième grande famille de protéines de nucléation des microfilaments d'actine.
Contrairement aux formines, qui initient des microfilaments linéaires, et au complexe Arp2/3, qui génère des réseaux ramifiés, elles nucléent de nouveaux microfilaments en recrutant directement plusieurs monomères d'actine G grâce à leurs domaines WH2.


 fonctions biologiques).