


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Déramification des microfilaments ramifiés
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

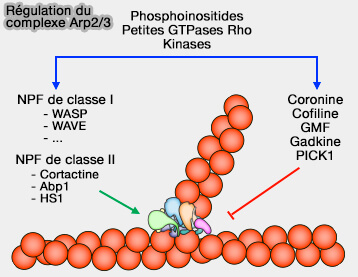
La déramification des microfilaments d'actine ramifiés dissocie les branches nucléées par le complexe Arp2/3 grâce à l'action coordonnée de GMF, de la cofiline, de la coronine et d'autres protéines régulatrices, assurant le remodelage rapide du cytosquelette.
Les réseaux de microfilaments d'actine ramifiés, nucléés par le complexe Arp2/3, sont des structures très dynamiques dont le renouvellement ne dépend pas uniquement du sectionnement et de la dépolymérisation des microfilaments, mais également de la déramification, c'est-à-dire du détachement des branches au niveau de leur jonction avec le filament mère.
(Figure : vetopsy.fr)
Ce processus permet le recyclage du complexe Arp2/3 et participe au remodelage rapide des réseaux ramifiés qui résulte de l'action coordonnée de plusieurs protéines :
- le GMF (Glia Maturation Factor), principal facteur de déramification,
- la coronine,
- la cofiline et AIP1.
Ce remodelage intervient dans de nombreux processus cellulaires, parmi lesquels :
- la migration cellulaire,
- l'endocytose,
- la phagocytose,
- la formation des lamellipodes,
- le remodelage du cortex cellulaire.
Mécanismes de la déramification
Les réseaux de microfilaments d'actine ramifiés sont des structures transitoires dont le renouvellement nécessite le détachement des branches nucléées par le complexe Arp2/3.
Cette déramification résulte de l'action coordonnée de plusieurs mécanismes complémentaires.
1. Au cours du vieillissement du réseau, les sous-unités d'actine ainsi que la sous-unité Arp2 du complexe Arp2/3 hydrolysent progressivement leur ATP.
Ces changements nucléotidiques modifient la conformation du point de branchement et diminuent progressivement sa stabilité.
2. Ce point de branchement fragilisé devient alors la cible des protéines de déramification, qui interviennent par des mécanismes complémentaires pour provoquer la dissociation de la branche et le recyclage du complexe Arp2/3.
Acteurs de la déramification
GMF (Glia Maturation Factor)

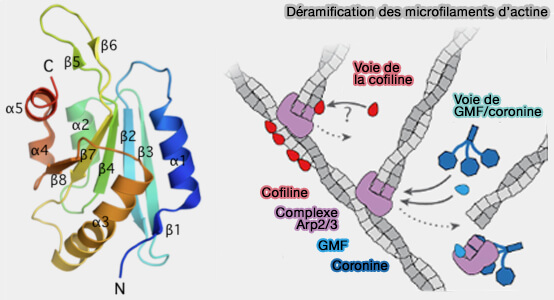
Le GMF (Glia Maturation Factor) est le principal facteur de déramification des réseaux de microfilaments d'actine nucléés par le complexe Arp2/3 ( polymérisation de l'actine).
1. Le GMF (Glial Maturation Factor) appartient à la superfamille ADF/cofiline et présente une homologie d'environ 39 % avec la cofiline (GMF as an actin network remodeling factor 2018).
- Il possède un domaine ADF-H dont l'organisation générale est proche de celle de la cofiline, mais dont les résidus impliqués dans la liaison à l'actine ne sont pas conservés.
- Contrairement à la cofiline, le GMF ne se fixe donc pas le long des microfilaments d'actine, mais reconnaît spécifiquement les jonctions de branchement du complexe Arp2/3.
2. Le GMF se fixe préférentiellement sur les complexes Arp2/3 liés à l'ADP, c'est-à-dire sur les branches âgées après hydrolyse de l'ATP, ce qui favorise le remodelage des réseaux ramifiés, sans perturber la nucléation des nouvelles branches (Mechanisms of actin disassembly and turnover 2023).
(Figure : vetopsy.fr d'après topsan.org et Bollati et coll)
a. Son mécanisme repose sur deux sites d'interaction distincts :
- le premier se fixe au complexe Arp2/3,
- le second établit un contact avec la première sous-unité d'actine du filament fils, uniquement au niveau de la jonction de branchement, et non le long du microfilament (GMF severs actin-Arp2/3 complex branch junctions by a cofilin-like mechanism 2014).
b. Ces deux interactions déstabilisent la jonction entre le filament mère et le filament fils, provoquant la dissociation de la branche et le recyclage du complexe Arp2/3 (Structural basis for regulation of Arp2/3 complex by GMF 2013).
Le mécanisme est apparenté à celui de la cofiline, mais il est spécialisé pour les jonctions Arp2/3-actine plutôt que pour les microfilaments d'actine ( mécanisme de la cofiline)
c. Le GMF agit souvent en synergie avec la coronine lors de la déramification des réseaux ramifiés.
Cette dernière facilite le remodelage du point de branchement et potentialise l'action du GMF sur le complexe Arp2/3.
3. À plus forte concentration, le GMF inhibe également la nucléation de nouvelles branches en entrant en compétition avec le domaine VCA des protéines WASP/WAVE pour la liaison au complexe Arp2/3 (GMF as an actin network remodeling factor 2018).
Coronine
La coronine est une protéine de liaison à l'actine qui participe au remodelage des réseaux de microfilaments d'actine ramifiés en régulant l'activité du complexe Arp2/3 et de la cofiline.
Elle favorise ainsi la déramification des branches et le renouvellement du cytosquelette d'actine.
1. Les coronines constituent une famille de protéines conservées au cours de l'évolution.
(Figure : vetopsy.fr)
a. Chez les mammifères, sept isoformes (coronin 1A à 7) ont été identifiées, dont la coronine 1B est la mieux caractérisée pour son rôle dans la dynamique des réseaux ramifiés.
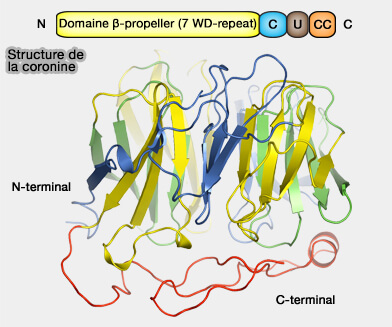
b. La coronine est constituée de (The Crystal Structure of Murine Coronin-1: A Regulator of Actin Cytoskeletal Dynamics in Lymphocytes 2005) :
- un domaine N-terminal formé de répétitions WD (WD-repeat) organisées en β-propeller, responsable de la liaison aux microfilaments d'actine,
Une étude a également identifié, entre les feuillets β2 et β3 du domaine WD, un motif CRIB (Cdc42- and Rac-interactive binding), type particulier du domaine GBD (GTPase-Binding Domain), capable d'interagir avec certaines petites GTPases Rho, suggérant un rôle supplémentaire dans la régulation de la dynamique du cytosquelette (A Cdc42- and Rac-interactive binding (CRIB) domain mediates functions of coronin 2014).
- une région médiane flexible comprenant une partie " conservée " (C) et une partie variable (U) selon les isoformes,
- un domaine C-terminal coiled-coil (CC), responsable de l'oligomérisation de la protéine et de ses interactions avec plusieurs partenaires.
2. La coronine intervient à plusieurs niveaux dans le remodelage des réseaux ramifiés.

(Figure : vetopsy.fr)
a. Elle se fixe aux microfilaments d'actine par son domaine WD et interagit avec le complexe Arp2/3 par son domaine coiled-coil (CC) et cette double interaction lui permet de remodeler le point de branchement.
- En entrant en compétition avec la cortactine, protéine de stabilisation dans les jonctions Arp2/3-actine, la coronine favorise la dissociation du complexe Arp2/3 et déstabilise progressivement la jonction entre le filament mère et le filament fils, dont l'angle devient moins stable (Coronin 1B antagonizes Cortactin and remodels Arp2/3-containing actin branches in lamellipodia 2008).
- La coronine agit ensuite en synergie avec la cofiline et AIP1 pour favoriser le démantèlement rapide (" burst ") des réseaux ramifiés ( coopération d'AIP1 avec la cofiline).
b. La coronine favorise également le recrutement et l'activité de la cofiline en accélérant la libération du phosphate inorganique (Pi) des sous-unités d'actine, augmentant ainsi la proportion d'actine-ADP, substrat préférentiel de la cofiline ( mécanisme d'action de la cofiline).
c. Enfin, l'action de la coronine dépend de l'état nucléotidique des sous-unités d'actine (Cofilin recruitment and function during actin-mediated endocytosis dictated by actin nucleotide state 2007).
- Dans les régions récentes riches en actine-ATP ou actine-ADP-Pi, elle limite l'action de la cofiline.
- Dans les régions plus anciennes riches en actine-ADP, elle agit en synergie avec cette dernière pour accélérer le remodelage des réseaux d'actine (Coronin switches roles in actin disassembly depending on the nucleotide state of actin 2009).
Cofiline
La cofiline favorise également la déramification des réseaux de microfilaments d'actine en complément de son rôle majeur dans le sectionnement et la dépolymérisation.
1. Elle favorise la déramification par deux mécanismes complémentaires :
- en entrant en compétition avec le complexe Arp2/3 pour sa liaison au microfilament d'actine,
- en modifiant la conformation des sous-unités d'actine, ce qui diminue progressivement l'affinité du complexe Arp2/3 pour le filament mère et favorise la dissociation de la branche (Cofilin Dissociates Arp2/3 Complex and Branches from Actin Filaments 2009 et ADF/Cofilin: A Functional Node in Cell Biology 2011).
2. La cofiline agit en synergie avec la coronine, le GMF et AIP1 pour assurer le renouvellement rapide des réseaux ramifiés ( mécanisme d'action de la cofiline).
Retours aux protéines de sectionnement
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation