• Comportement du chien et
    du chat
  • Celui qui connait vraiment les animaux est par là même capable de comprendre pleinement le caractère unique de l'homme
    • Konrad Lorenz
  • Biologie, neurosciences et
    sciences en général
  •  Le but des sciences n'est pas d'ouvrir une porte à la sagesse infinie,
    mais de poser une limite à l'erreur infinie
    • La vie de Galilée de Bertold Brecht

Constituants cellulaires
Cytosquelette : microfilaments d'actine
Nucleation-Promoting Factors (NPF) : membres

Sommaire
définition

Les NPF (Nucleation-Promoting Factors) activent le complexe Arp2/3, une des principales protéines de nucléation (ou protéines amorces) de l'actine, pour favoriser la polymérisation des microfilaments d'actine.

Les autres protéines de nucléation sont :

Toutefois, le complexe Arp2/3 possède à lui seul une faible activité de nucléation et doit être activé par un NPF (Nucleation-Promoting Factor), qui favorise les changements conformationnels nécessaires à son activité nucléatrice.

  • Le complexe Arp2/3 génère des réseaux ramifiés de microfilaments d'actine, une architecture qui joue un rôle majeur dans différents processus cellulaires.
bien

L'assemblage des microfilaments d'actine par le complexe Arp2/3 et les NPF est étudié dans un chapitre spécifique.

Vue d'ensemble des NPF

Les NPF (Nucleation-Promoting Factors) Les NPF (Nucleation-Promoting Factors) peuvent être distingués en deux types selon leur mode d'interaction avec le complexe Arp2/3 et leur mécanisme d'activation.

Certains NPF, notamment JMY, possèdent également des activités sur l'actine indépendantes du complexe Arp2/3.

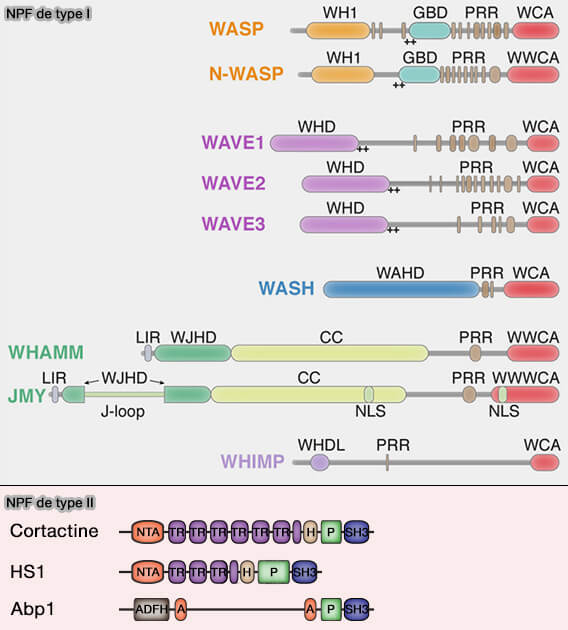
Organisation structurale des NPF de type I et de type II
(Figure : vetopsy.fr adaptée d'après Kramer et coll)

1. Cette classification en NPF de type I et de type II, surtout utilisée dans la littérature classique, reste utile pour distinguer leurs mécanismes d'action.

  • Les NPF de type I (famille WASP), possédant un domaine VCA/WCA, activent directement le complexe Arp2/3 en favorisant son changement conformationnel et en lui apportant un monomère d'actine G qui participe à la nucléation du nouveau microfilament.
  • Les NPF de type II, comme la cortactine, son homologue évolutif Abp1 chez la levure, et HS1 (Haematopoietic cell-specific protein 1), ne possèdent pas de domaine VCA/WCA et régulent le complexe Arp2/3 selon un mécanisme différent de celui des NPF de type I.

3. Les différents NPF présentent des localisations subcellulaires spécifiques, déterminées par leurs domaines d'interaction, leurs partenaires et les complexes multiprotéiques auxquels ils appartiennent (A Nucleator Arms Race : Cellular Control of Actin Assembly 2010 et Rôles de la clathrine dans la formation des lamellipodes 2011).

Famille WASP (NPF de type I))

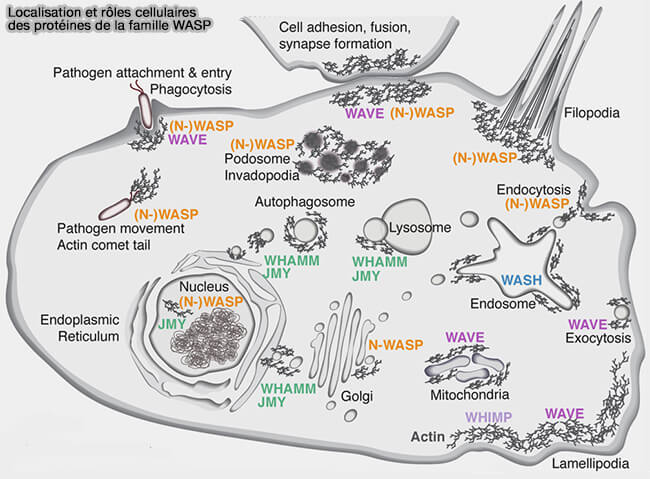
La famille WASP (Wiskott-Aldrich Syndrome Protein) regroupe plusieurs familles de NPF qui activent le complexe Arp2/3 dans différents compartiments subcellulaires (WASP Family Proteins: Molecular Mechanisms and Implications in Human Disease 2022).

Localisation et rôles cellulaires des protéines de la famille WASP
(Figure : vetopsy.fr d'après Kramer et coll)

Certains NPF, notamment WAVE et WASH, appartiennent à des complexes multiprotéiques qui contrôlent leur localisation subcellulaire et l'accessibilité de leur domaine VCA/WCA aux activateurs situés en amont (The Arp2/3 Regulatory System and Its Deregulation in Cancer 2018).

WASP et N-WASP

Les protéines WASP (Wiskott-Aldrich Syndrome Protein) et N-WASP (Neuronal WASP, codée par WASL) sont des NPF qui activent le complexe Arp2/3 et favorisent ainsi la formation de réseaux ramifiés de microfilaments d'actine, notamment au cours de :

1. WASP, codée par WAS, est principalement exprimée dans les cellules hématopoïétiques, où elle participe notamment à l'organisation du cytosquelette d'actine nécessaire à la migration, à l'adhérence et aux fonctions immunitaires (Molecular difference between WASP and N-WASP critical for chemotaxis of T-cells towards SDF-1α 2015).

Les mutations du gène WAS sont responsables du syndrome Wiskott-Aldrich.

2. N-WASP, codée par WASL et beaucoup plus largement exprimée, intervient notamment dans :

Remarque : les Ena/VASP, à ne pas confondre avec les WASP, sont concentrés à la pointe des filopodes et aux points focaux des lamellipodes.

WAVE1/2/3

1. Les trois protéines WAVE, WAVE1, WAVE2 et WAVE3 (WASP-family verprolin-homologous proteins, homologues des protéines SCAR), sont des NPF du complexe Arp2/3 particulièrement impliqués dans la formation des réseaux ramifiés de microfilaments d'actine des lamellipodes.

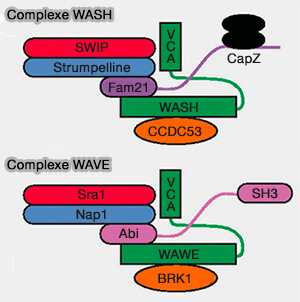
a. Elles se présentent sous forme hétéropentamérique comme WASH avec quatre autres protéines (WAVE Regulatory Complex ou WRC) comme WASH (WASH and WAVE actin regulators of the Wiskott–Aldrich syndrome protein (WASP) family are controlled by analogous structurally related complexes 2010) :

b. L'absence d'un des composants déstabilise le complexe WAVE qui est dégradé par le protéasome.

2. Les trois protéines WAVE présentent des fonctions en partie distinctes, bien que l'activation du WRC soit notamment contrôlée par la petite GTPase Rac-1.

a. WAVE2 a un rôle majeur dans la formation et la dynamique des bords d'attaque des lamellipodes en aval de Rac1.

b. WAVE1 est impliquée dans  :

c. WAVE3 participe également à la formation des CDR et peut favoriser la formation et l'activité des invadopodes, notamment dans certaines cellules tumorales.

Complexe WASH

Le complexe WASH, associé à d'autres complexes endosomaux, est essentiel au tri et au recyclage endocytaire d'une large gamme de protéines membranaires en contrôlant la polymérisation de réseaux ramifiés de microfilaments d'actine à la surface des endosomes (loupe complexes WASH et complexes endosomaux).

Le complexe WASH est un complexe pentamérique regroupant  :

bien

Le complexe WASH est étudié dans un chapitre spécial.

WHAMM

WHAMM (WASP Homolog Associated with Actin, Membranes and Microtubules) est un NPF associé aux membranes du réticulum endoplasmique (RE) et de l'appareil de Golgi, qui interagit avec les microfilaments d'actine et les microtubules.

a. Par son activation du complexe Arp2/3 et son interaction avec les microtubules, WHAMM participe à l'organisation des membranes et au transport du réticulum endoplasmique vers l'appareil de Golgi (WHAMM is an Arp2/3 complex activator that binds microtubules and functions in ER to Golgi transport 2009).

b. WHAMM favorise également la formation de réseaux ramifiés de microfilaments d'actine à la surface des autolysosomes et participe ainsi à la tubulation des protolysosomes WHAMM initiates autolysosome tubulation by promoting actin polymerization on autolysosomes 2019).

JMY

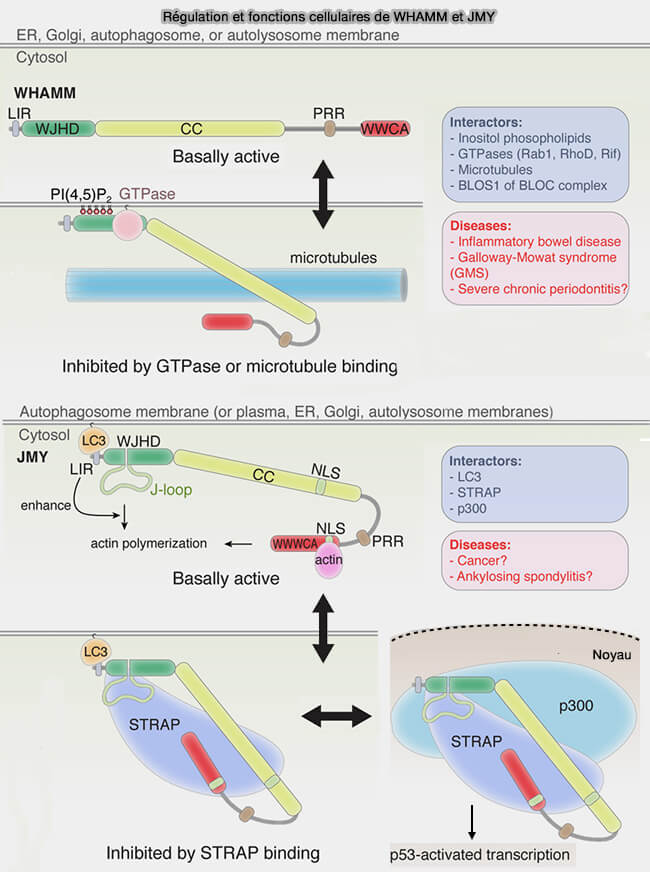
JMY (junction-mediating and regulatory protein) est un NPF particulier qui possède également une activité intrinsèque de nucléation de l'actine grâce à ses domaines WH2 multiples (loupeprotéines à domaines WH2 multiples).

JMY peut ainsi favoriser la nucléation des microfilaments d'actine selon deux mécanismes :

Régulation et fonctions cellulaires de WHAMM et JMY
(Figure : vetopsy.fr d'après Kramer et coll)

Cortactine et HS1 (NPF de type II)

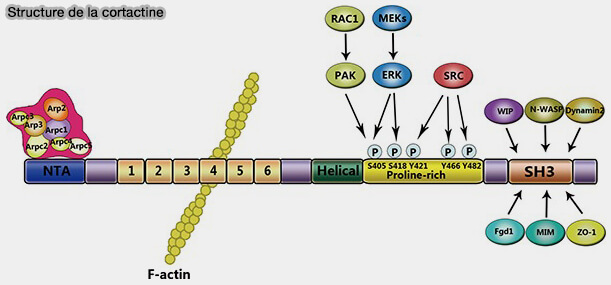
Les NPF de type II, comme la cortactine, son homologue évolutif Abp1 chez la levure et HS1 (Haematopoietic cell-specific protein 1) ne possèdent pas de domaine VCA/WCA et activent plus faiblement le complexe Arp2/3 .

Structure de la cortactine
(Figure : vetopsy.fr d'après Yin et coll)

Structure des NPF