


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Nucleation-Promoting Factors (NPF) : structure
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

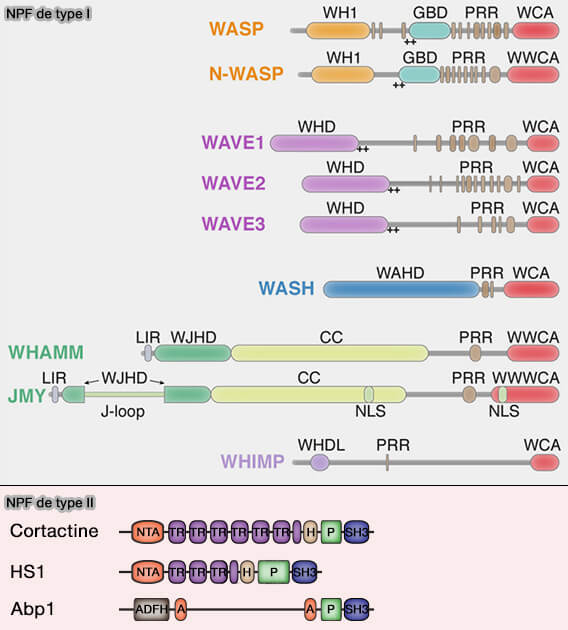
Les NPF (Nucleation Promoting Factor) de type I possèdent un domaine C-terminal VCA/WCA commun et des régions N-terminales spécifiques qui assurent leur interaction avec différents partenaires et leur régulation, tandis que les NPF de type II présentent une organisation structurale différente.
- Les NPF de type I de la famille WASP possèdent un domaine VCA/WCA
- Les NPF de type II comme la cortactine, son homologue évolutif Abp1 chez la levure et HS1 (Haematopoietic cell-specific protein 1 chez la levure, ne possèdent pas de domaine VCA/WCA.
(Figure : vetopsy.fr adaptée d'après Kramer et coll)
Structure des NPF de type I
Les NPF de type I de la famille WASP possèdent
- un domaine C-terminal VCA/WCA commun,
- des régions N-terminales qui diffèrent selon les membres.
Domaine C-terminal : VCA/WCA
Le domaine VCA/WCA comprend trois régions fonctionnelles :
- le domaine WH2 (V, Verprolin-homology),
- la région C (Central ou Connector),
- la région A (Acidic).
Domaine WH2

Vous pouvez lire : The WH2 Domain and Actin Nucleation – Necessary but Insufficient (2016).
Le domaine WH2 (WASP-Homology 2), également appelé région V (Verprolin-homology), dans le domaine VCA/WCA des NPF, se lie aux monomères d'actine G (The β-Thymosin/WH2 Fold Multifunctionality and Structure 2007 et Structure, Function, and Evolution of the β-Thymosin/WH2 (WASP-Homology2) Actin-Binding Module 2007).
1. Ce domaine WH2 ou β2/WH2 est présent dans de nombreuses protéines impliquées dans la dynamique de l'actine :
- les NPF de type I,
- les protéines de nucléation (Tandem-monomer-binding nucleator) comme Spire et Cordon-Bleu,
- la thymosine-β4 et des protéines apparentées comme Ciboulot.
2. Le domaine WH2 est un court module de liaison à l'actine, généralement constitué d'environ 17 à 27 résidus (Actin filament nucleation and elongation factors – structure-function relationships 2009).

(Figure : vetopsy.fr d'après Dominguez)
a. Sa partie N-terminale forme une hélice-α amphiphilique qui se lie au sillon hydrophobe entre les sous-domaines 1 et 3 du monomère d'actine G ( structure de l'actine).
Ce mode de liaison à l'actine est également retrouvé dans plusieurs autres protéines de liaison à l'actine (ABP), en particulier dans les domaines ADF-H et les G1 et G4 de la gelsoline (The β-Thymosin/WH2 Domain: Structural Basis for the Switch from Inhibition to Promotion of Actin Assembly 2004).
b. Après cette hélice, le domaine WH2 se prolonge vers le sous-domaine 1 de l'actine par une région plus étendue contenant un motif de type LKKT(V), dont la séquence varie avec la protéine.
Dans WAVE2, il correspond aux résidus Leu449, Arg450, Arg451 et Val452 (LRRV).
- La leucine (L) est le résidu le plus conservé et le plus important du motif qui s'insère dans le sillon hydrophobe de l'actine située entre les sous-domaines 1 et 3.
- Les deux résidus suivants sont généralement des lysines (K) ou des l'arginines (R), Arg450 et Arg451 dans WAVE2, qui établissent des interactions électrostatiques avec les résidus Asp24 et Asp25 de l'actine.
- Le quatrième résidu est généralement une thréonine, une valine, une alanine ou une sérine Val452 dans WAVE2, qui s'insère dans une petite poche de l'actine.

L'hélice N-terminale et le motif LKKT(V) constituent le cœur du domaine WH2 (Structural insights into de novo actin polymerization 2010).
Domaine C et A
1. Le domaine C, Central/Connecting (Connector), est constitué d'une vingtaine de résidus.
a. La région C forme une hélice α amphipathique (αG), qui participe, avec la région A, à la liaison et à l'activation du complexe Arp2/3 pour nucléer les réseaux ramifiés de microfilaments d'actine.
Le module CA interagit avec deux sites du complexe, situés respectivement au niveau de l'interface Arp2-ARPC1/p40 et d'Arp2.
b. Chez WASP et N-WASP, la région C participe également à l'auto-inhibition ( autoinhibition des WASP).
- Son hélice αG, interagit avec le domaine auto-inhibiteur AI/IS de WASP ou N-WASP, situé dans la partie C-terminale de leur domaine GBD/PBD.
- Cette interaction intramoléculaire contribue à masquer le domaine VCA/WCA.
2. La région A (Acidic), riche en résidus acides, participe à la liaison du domaine VCA/WCA au complexe Arp2/3 et à son activation.
Contrairement à la région C, elle n'intervient pas dans l'interaction auto-inhibitrice avec le domaine AI/IS décrite ci-dessus.
Domaine riche en proline (PRD ou PRL)
Le domaine riche en proline (PRD ou PRL) est une région intrinsèquement désordonnée contenant de nombreux motifs riches en proline qui constituent des sites de liaison pour de nombreuses protéines pour différents partenaires.
Plusieurs motifs PxxP se lient à des protéines possédant un domaine SH3 (Src-homology 3).
1. Chez WASP et N-WASP, le PRD permet des interactions avec :
- les protéines adaptatrices Nck (Non-catalytic region of tyrosine kinase adaptor protein.) et Grb2 (Growth factor receptor-bound protein 2), la tyrosine kinase Abl (Abelson) et la cortactine, par l'intermédiaire de motifs PxxP reconnus par leurs domaines SH3.
- les complexes profiline-actine, dont le recrutement est assuré par des séquences polyproline comprenant notamment des motifs de type GPPPPP (ou GP5).
La proximité du PRD et du domaine WH2 favorise le transfert des monomères d'actine G recrutés par la profiline vers le domaine WH2 et contribue à l'élongation des microfilaments d'actine (WH2 and proline‐rich domains of WASP‐family proteins collaborate to accelerate actin filament elongation 2017).
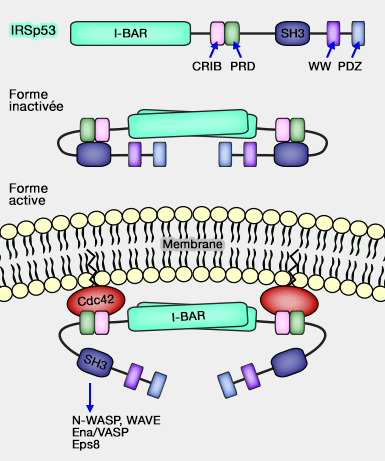
2. Chez WAVE, le PRD interagit avec IRSp53 (Insulin Receptor Substrate protein of 53 kDa) et participe ainsi au recrutement et à la régulation du complexe WAVE.
- Le domaine SH3 d'IRSp53 se lie au PRD de WAVE2, tandis que son domaine I-BAR se lie à la membrane plasmique et favorise sa déformation vers l'extérieur.
- IRSp53 contribue ainsi à coupler l'activation de WAVE2 et la polymérisation des microfilaments d'actine à la formation de protrusions membranaires, notamment des lamellipodes.
Régions N-terminales
Les régions N-terminales diffèrent selon les membres de la famille WASP et déterminent en grande partie leurs interactions, leur localisation et leur régulation (The WASP and WAVE family proteins 2009).
WASP et N-WASP
WASP et N-WASP possèdent, de l'extrémité N-terminale vers le domaine PRD :
- un domaine WH1,
- une région basique B,
- un domaine GBD/PBD.
1. Le domaine WH1 (WASP-homology-1) possède une structure similaire au domaine EVH1 (Ena/VASP homology 1) des Ena/VASP (The WH1 and EVH1 Domains of WASP and Ena/VASP Family Members Bind Distinct Sequence Motifs 2002).
a. Le domaine WH1 présente un repliement structural apparenté à celui des domaines PH, mais :
- contrairement aux domaines PH, il ne se lie pas au PI(4,5)P2 ou PIP2,
- contrairement aux domaines EVH1 des Ena/VASP, il reconnaît des séquences protéiques différentes.
b. Le domaine WH1 se lie aux protéines WIP par un motif spécifique et contribue ainsi à la stabilisation de WASP et N-WASP et à leur protection contre la dégradation.
De nombreuses mutations responsables du syndrome Wiskott-Aldrich sont localisées dans le domaine WH1 de WASP et peuvent perturber sa structure ou ses interactions, en particulier avec WIP.
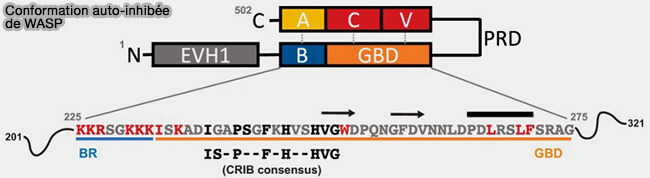
2. La région B (basique), située immédiatement en amont du GBD, riche en résidus chargés positivement:
- se lie au PI(4,5)P2 ou PIP2, en particulier chez N-WASP,
- participe à la levée de l'auto-inhibition de N-WASP en synergie avec Cdc42, favorisant ainsi l'exposition du domaine VCA/WCA..
(Figure : vetopsy.fr d'après Tetley et coll)
3. Le domaine de liaison aux petites GTPases, i.e. GBD (GTPase-Binding Domain), appelé aussi PBD (p21 binding domain) comprend deux régions (Physical Mechanisms of Signal Integration by WASP Family Proteins 2011).
- Le motif CRIB (Cdc42/Rac interactive binding motif) est la région N-terminale la plus conservée des domaines GBD/PBD.
- La région auto-inhibitrice (AI), appelé aussi IS (Inhibitor domain), moins bien conservée et localisée au niveau C-terminal de CRIB, participe au maintien de WASP et N-WASP dans leur conformation auto-inhibée en interagissant avec l'hélice αG de la région C du domaine VCA/WCA (Bond swapping from a charge cloud allows flexible coordination of upstream signals through WASP: Multiple regulatory roles for the WASP basic region 2018).
Remarque : le domaine GBD/PBD est quelquefois utilisé comme synonyme de domaine CRIB.
Le domaine GBD/PBD est étudié dans un chapitre spécial.
WAVE
Les protéines WAVE comportent plusieurs régions caractéristiques (WAVE signalling: from biochemistry to biology 2006).
1. Le domaine N-terminal SHD/WHD (Scar-Homology Domain/WAVE-Homology Domain), participe à l'assemblage du complexe régulateur WAVE (WRC, WAVE Regulatory Complex), complexe pentamérique constitué de WAVE, Abi1/2/3, NCKAP/Nap1, Sra1/CYFIP et BRK1/HSPC300.
- Il se lie directement à Abi1/2/3 et à BRK1/HSPC300.
- Abi se lie également à Nap1, lui-même lié à Sra1/CYFIP, qui se lie à Rac1-GTP, ce qui permet de coupler l'activation de la petite GTPase Rac1 à celle du complexe WAVE (The Nance–Horan syndrome protein encodes a functional WAVE homology domain (WHD) and is important for co-ordinating actin remodelling and maintaining cell morphology 2010)..
(Figure : vetopsy.fr)
2. La région B (basique), riche en résidus chargés positivement, se lie aux phosphoinositides membranaires, préférentiellement au PI(3,4,5)P3 ou PIP3 et, avec une affinité moindre, au PI(4,5)P2 ou PIP2, notamment pour WAVE2 (Activation of the WAVE complex by coincident signals controls actin assembly 2009).
Cette interaction contribue au recrutement du complexe WAVE à la membrane plasmique et favorise son activation en coopération avec la petite GTPase Rac1.
Structure des NPF
de type II
Les NPF de type II, comprenant la cortactine et HS1 ainsi que leur homologue évolutif Abp1 chez la levure, ne possèdent pas le domaine VCA/WCA caractéristique des NPF de type I.
1. La cortactine et HS1 (Haematopoietic cell-specific protein 1) possèdent une région N-terminale acide (NTA, N-Terminal Acidic) qui se lie au complexe Arp2/3, suivie de répétitions impliquées dans la liaison aux microfilaments d'actine.
Elles participent notamment à la stabilisation des ramifications ( protéines de stabilisation).
2. Leur région C-terminale comporte notamment un domaine SH3, qui permet des interactions avec de nombreuses protéines impliquées dans la dynamique du cytosquelette d'actine.
Remarque : Abp1 présente une organisation différente, mais possède également une région acide de liaison au complexe Arp2/3 et un domaine SH3 C-terminal.
Régulations des NPF
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation