La régulation des myosines II du muscle lisse et des cellules non-musculaires repose principalement sur la phosphorylation de leurs chaînes légères régulatrices (RLC), contrôlée notamment par la MLCK et la MLCP.
Vue d'ensemble de la régulation des myosines II
La régulation de l'activité des myosines II diffère entre les types cellulaires.
2. Dans le muscle lisse et les cellules non-musculaires, dont les myosines II présentent généralement les caractéristiques de moteurs plus lents, la phosphorylation des RLC constitue au contraire un mécanisme majeur de régulation de leur activité.
MLCK (Myosin Light-Chain Kinase), kinase des chaînes légères de myosine, phosphoryle les RLC, ce qui favorise l'activation des myosines II et la contraction ou, dans les cellules non-musculaires, la production de forces contractiles.
MLCP (Myosin Light-Chain Phosphatase), phosphatase des chaînes légères de myosine, assure leur déphosphorylation, ce qui favorise l'inactivation des myosines II et la relaxation musculaire ou, dans les cellules non-musculaires, la diminution de la contractilité.
Dans les muscles lisses et les cellules non-musculaires, la régulation de l'activité des myosines II dépend ainsi largement de l'équilibre entre phosphorylation et déphosphorylation de la RLC.
État déphosphorylé et autoinhibition des myosines II
1. Dans cet état, l'activité ATPasique activée par l'actine est très faible et l'assemblage des myosines II en filaments est inhibé, ce qui réduit leur capacité à produire des forces contractiles.
Dans le muscle lisse, cet état favorise ainsi la relaxation musculaire.
Dans les cellules non-musculaires, il diminue la contractilité des réseaux d'actomyosine.
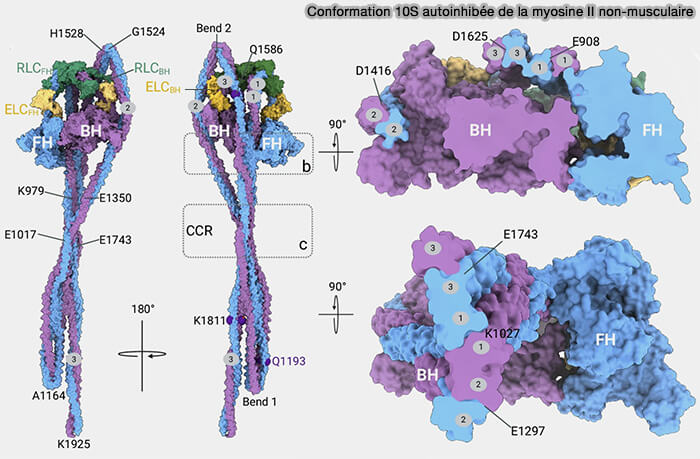
2. L'autoinhibition de la myosine dans la conformation 10S repose sur plusieurs interactions intramoléculaires.
a. Dans la conformation 10S, les deux têtes établissent entre elles des interactions asymétriques formant un interacting-heads motif (IHM), dans lequel une tête dite " blocked head " interagit avec l'autre tête, dite " free head ".
Ces interactions séquestrent des régions du domaine moteur impliquées dans la liaison à l'actine et contribuent ainsi à l'autoinhibition.
b. La queue se replie en trois segments qui établissent différentes interactions entre eux et avec les têtes, stabilisant la conformation compacte 10S et masquant également des régions nécessaires à l'assemblage de la myosine en filaments.
Conformation 10S autoinhibée de la myosine II non-musculaire
(Figure d'après Heissler et coll)
La sous-unité régulatrice et de ciblage, MYPT1 (Myosin Phosphatase Targeting Subunit 1), grande sous-unité régulatrice qui lie PP1c, cible le complexe vers la myosine, contribuant ainsi à sa spécificité pour le substrat.
La troisième sous-unité (M20) petite sous-unité d'environ 20 kDa, se lie à MYPT1 et participe à la régulation de la MLCP.
b. Les différentes sous-unités de la MLCP existent sous plusieurs isoformes et peuvent former des complexes dont la composition varie selon les tissus.
La MLCP classique du muscle lisse associe notamment PP1cβ à MYPT1.
Des complexes apparentés contenant MYPT2 sont notamment présents dans les muscles striés.
c. L'activité de la MLCP est régulée par différentes voies de signalisation, notamment la voie RhoA-ROCK, qui peut inhiber la MLCP et maintenir ainsi les RLC dans un état phosphorylé.
Phosphorylation des chaînes légères régulatrices et activation des myosines II
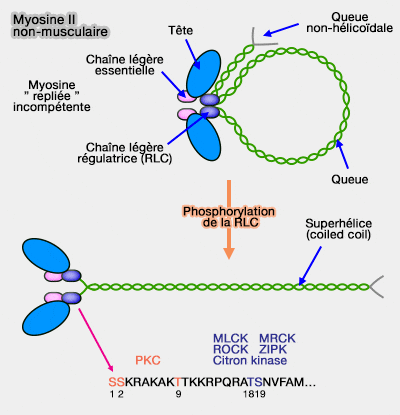
1. La phosphorylation des chaînes légères régulatrices (RLC) déstabilise la conformation compacte autoinhibée 10S et favorise le passage de la myosine II vers une conformation étendue active. L
Le déploiement de la molécule lève l'autoinhibition des domaines moteurs et rend accessibles les régions de la queue nécessaires à l'assemblage des myosines II en filaments bipolaires.
2. Dans cet état, l'activité ATPasique activée par l'actine augmente et les myosines II peuvent interagir avec les microfilaments d'actine et produire des forces contractiles.
Dans le muscle lisse, cet état favorise ainsi la contraction musculaire.
Dans les cellules non-musculaires, il augmente la contractilité des réseaux d'actomyosine.
La phosphorylation principale intervient sur Ser19.
La RLC peut également être phosphorylée sur Thr18 et la double phosphorylation de Thr18 et Ser19 intervient dans les cellules non-musculaires au cours de processus nécessitant une forte activité contractile de l'actomyosine, comme la cytoinèse et la migration cellulaire, et peut renforcer l'activation des myosines II et modifier la dynamique de leurs filaments.
a. La MLCK possède un domaine sérine/thréonine kinase dont l'activité est contrôlée par une région autoinhibitrice associée à un domaine de liaison à la calmoduline.
En l'absence de Ca2+-calmoduline, cette région maintient le domaine kinase dans un état autoinhibé ( cf. plus bas).
b. Plusieurs MLCK apparentées sont exprimées selon les types cellulaires.
MYLK, souvent appelé MYLK1 dans certaines nomenclatures, est notamment exprimée dans le muscle lisse et les cellules non-musculaires.
Actions de ROCK sur la RLC
(Figure : vetopsy.fr)
MYLK2 est associé au muscle sitié squelettique.
MLK3 est associé au muscle cardiaque
Remarque : MYLK4 est une kinase apparentée dont les fonctions physiologiques restent moins bien caractérisées.
Elle favorise ainsi l'activation des myosines II et augmente la contractilité des réseaux d'actomyosine, notamment au cours de la formation des fibres de stress, de la migration cellulaire et de la cytocinèse.
Remarque : dans le muscle lisse, la MLCP peut également être inhibée par CPI-17 phosphorylée, ce qui contribue au maintien de la phosphorylation des RLC et à l'augmentation de la contractilité.
c. dans les muscle lisse et les cellules non-musculaires, l'activité des myosines II peut être modulée par de nombreux signaux extracellulaires qui agissent notamment sur ces deux voies.
Des médiateurs comme la noradrénaline, l'angiotensine II ou l'histamine peuvent ainsi modifier la contractilité des muscles lisses et, selon le type cellulaire, la forme, l'adhérence ou la migration des cellules non-musculaires.
5. Les chaînes lourdes des myosines II non-musculaires peuvent également être phosphorylées par différentes kinases, notamment PKC et CK2.
Cette phosphorylation, qui concerne principalement des sites situés dans la queue, participe à la régulation de l'assemblage et du désassemblage des filaments de myosine II, de leur localisation et de leur dynamique dans la cellule.


 contraction des muscles striés).