Les propriétés mécanochimiques des myosines déterminent leur vitesse, leur processivité, leur direction de déplacement et leur capacité à produire ou maintenir des forces sur les microfilaments d'actine.
Vue d'ensemble des propriétés mécanochimiques des myosines
1. Les myosines présentent des propriétés mécanochimiques très diverses qui dépendent notamment :
le rapport cyclique (duty ratio), c'est-à-dire la fraction du cycle ATPasique pendant laquelle la myosine reste fortement liée au microfilament d'actine,
la processivité, i.e. la capacité d'une myosine à effectuer plusieurs pas successifs le long d'un microfilament d'actine sans s'en dissocier,
les moteurs rapides, adaptés aux déplacements rapides et notamment à la contraction musculaire,
les moteurs lents, adaptés à la production ou au maintien prolongé de forces,
les moteurs processifs, capables d'effectuer plusieurs pas successifs le long d'un microfilament d'actine sans s'en dissocier,
les capteurs de déformation, dont la cinétique est fortement modifiée par les forces mécaniques auxquelles ils sont soumis.
3. Les classes de myosines peuvent contenir des moteurs présentant des propriétés mécanochimiques différentes.
Moteurs rapides
Les moteurs rapides sont notamment représentés par les myosines II rapides du muscle strié squelettique, dont le cycle mécanochimique permet de produire rapidement force et mouvement.
2. La vitesse de déplacement dépend notamment de la cinétique du cycle ATPasique et varie fortement selon l'isoforme de myosine II musculaire et les conditions expérimentales, pouvant atteindre plusieurs µm/s pour les myosines II musculaires rapides.
Moteurs lents
1. Les moteurs lents sont notamment adaptés à la production et au maintien prolongé de forces.
Remarque : la myosine II du muscle cardiaque présente également une cinétique plus lente que les isoformes rapides du muscle squelettique, mais sa régulation repose, comme dans le muscle squelettique, sur le système Ca2+-troponine-tropomyosine du filament fin ( cf. ci-dessus).
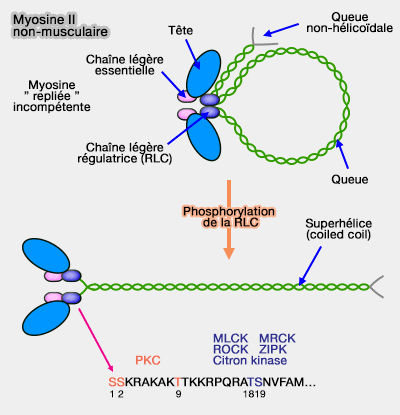
3. La régulation des myosines II des muscles lisses et des cellules non-musculaires repose notamment sur la phosphorylation par MLCK et la déphosphorylation par MLCP de leurs chaînes légères régulatrices (RLC).
Les moteurs processifs peuvent effectuer plusieurs pas successifs le long d'un microfilament d'actine avant de s'en dissocier, propriété notamment illustrée par :
les myosines V, moteurs dimériques dont les deux têtes fonctionnent de manière coordonnée,
les myosines IX, moteurs monomériques dont le domaine moteur possède une attache supplémentaire à l'actine.
Le rapport cyclique (duty ratio) des myosines V est élevé notamment en raison de la libération lente de l'ADP.
Chaque tête reste ainsi fortement liée à l'actine pendant environ 70 % de son cycle ATPasique, ce qui permet généralement à au moins une des deux têtes du dimère de rester liée au microfilament d'actine pendant le déplacement.
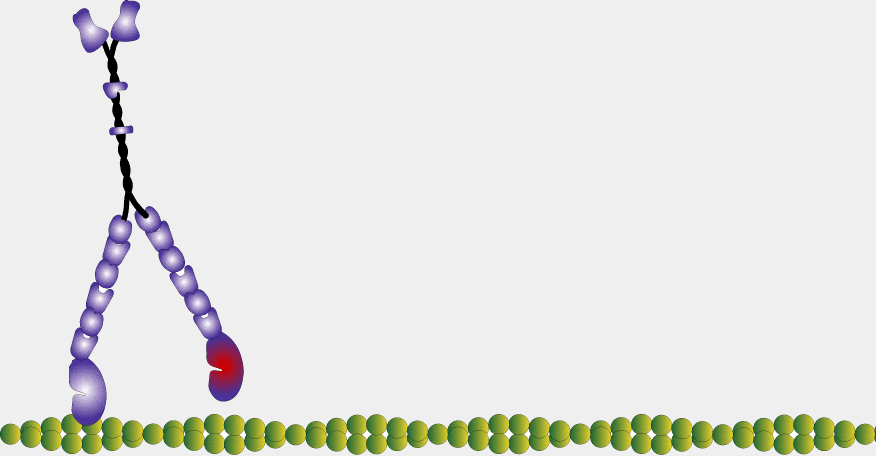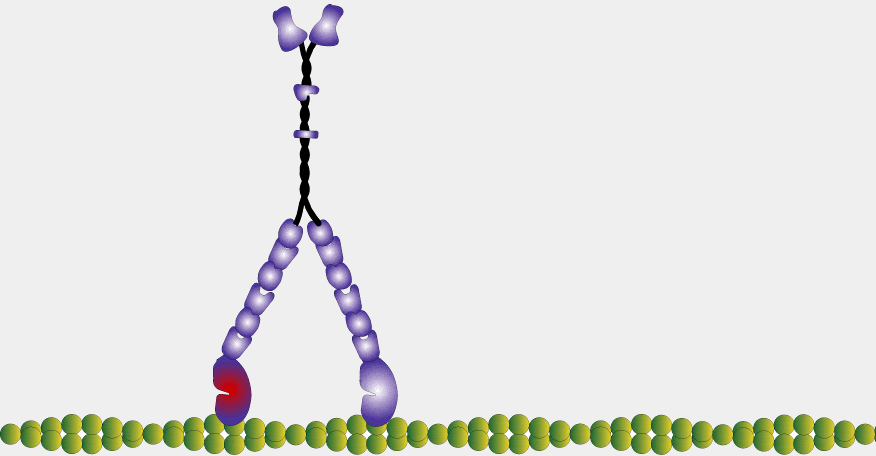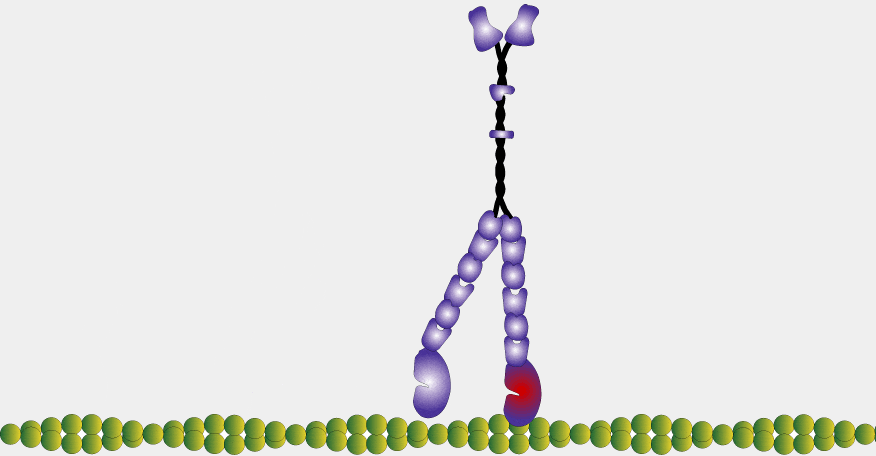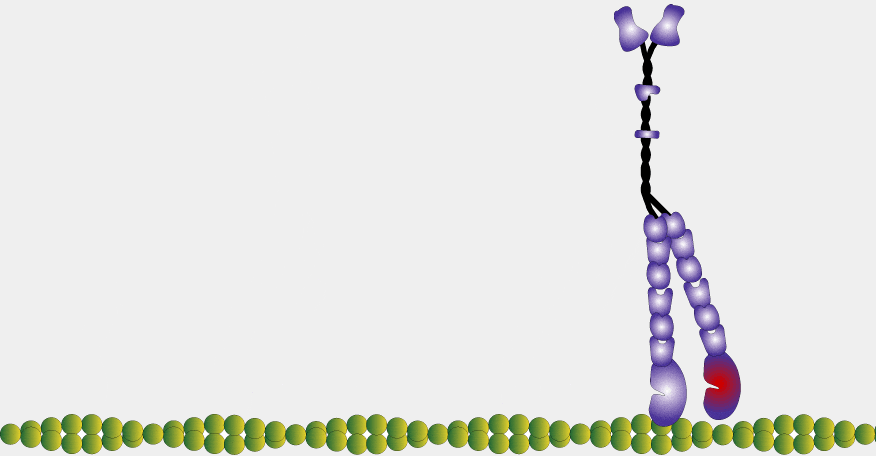
1. Dans le modèle main à main (hand-over-hand), représenté dans l'animation ci-dessus et aujourd'hui retenu pour les myosines V, les deux têtes avancent alternativement.
a. La tête située en arrière se détache, dépasse la tête restée liée à l'actine et se fixe environ 36 nm plus loin le long du microfilament d'actine.
Modèle de recyclage de Tfr avec les FIP
(Figure : vetopsy.fr d'après Boucher et coll)
b. Lors de ce mouvement, la tête qui se déplace parcourt environ 72 nm par rapport à sa position précédente, tandis que le moteur progresse d'environ 36 nm à chaque pas.
Ce pas d'environ 36 nm est adapté à la structure hélicoïdale du microfilament d'actine dont la répétition structurale est voisine de 36 nm.
Après avoir parcouru cette distance, la tête de myosine V retrouve des sous-unités d'actine orientées approximativement du même côté du filament et peut donc poursuivre son déplacement le long de cette même face.
Myosines IX (Myo9) : moteurs processifs monomériques
Les myosines IX (Myo9) constituent une classe particulière de moteurs processifs car, contrairement aux myosines V dimériques, elles sont monomériques et ne possèdent qu'un seul domaine moteur.
a. Cette insertion est exceptionnellement longue, d'environ 207 résidus chez Myo9a qui e contient un site de liaison à la calmoduline appelé MD-CBS (Motor Domain Calmodulin-Binding Site) dans sa partie N-terminale.
Structure de la myosine IX (Myo9)
(Figure : vetopsy.fr)
Une molécule de calmoduline se lie à ce site et reste associée au domaine moteur en présence ou en absence de Ca2+, avec des conformations différentes selon la concentration en Ca2+, ce qui suggère une régulation Ca2+-dépendante du domaine moteur.
b. Cette organisation permet aux myosines IX d'effectuer plusieurs cycles mécanochimiques successifs tout en restant associées au même microfilament d'actine.
RhoA-GTP active favorise la contractilité actomyosinique, notamment par l'intermédiaire de ROCK, tandis que sa conversion en RhoA-GDP inactive réduit cette contractilité.
Les myosines IX diminuent localement cette signalisation et modulent ainsi l'organisation et la contractilité du cytosquelette d'actine.
Remarque : les myosines IX possèdent également un domaine RA (Ras-associating), situé juste avant le domaine moteur et dont la fonction reste mal caractérisée, plisieurs motifs IQ (six chez Myo9a et quatre chez Myo9b)-et un domaine C1 dans la queue, petit domaine riche en cystéine qui interagit avec certains lipides membranaires ( interactions du domaine C1).
3. Chez les mammifères, cette classe comprend Myo9a et Myo9b.
Les forces mécaniques peuvent modifier la cinétique de plusieurs classes de myosines, notamment les myosines I, II, V et VI, et influencer la durée de leur liaison aux microfilament d'actine.
Myosines I (Myo1)
Les myosines I, en particulier Myo1b et Myo1c, constituent des exemples caractéristiques de moteurs mécanosensibles dont la cinétique est modulée par les forces mécaniques, Myo1b présentant un comportement particulièrement marqué de capteur de déformation ou strain sensor (Leveraging the membrane-cytoskeleton interface with myosin-1 2010).
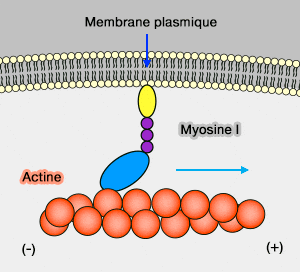
Myosine I
(Figure : vetopsy.fr)
Elles ont la particularité de se lier aux microfilaments d'actine par leur domaine moteur et aux membranes par leur queue.
un cou comportant un nombre variable de motifs IQ associés notamment à des calmodulines,
une queue contenant un domaine TH1 (Tail Homology 1), riche en résidus basiques, notamment en lysine et en arginine, qui assure la liaison aux membranes par interaction avec leurs phospholipides anioniques.
En outre, TH1 contient également une région de type PH (Pleckstrin Homolog-like) qui participe à la reconnaissance de certains phosphoinositides, avec une spécificité variable selon les isoformes?
3. Le génome des mammifères code huit isoformes de myosine I (Myo1a à Myo1h), classées notamment selon la structure de leur queue en myosines I à queue courte et à queue longue.
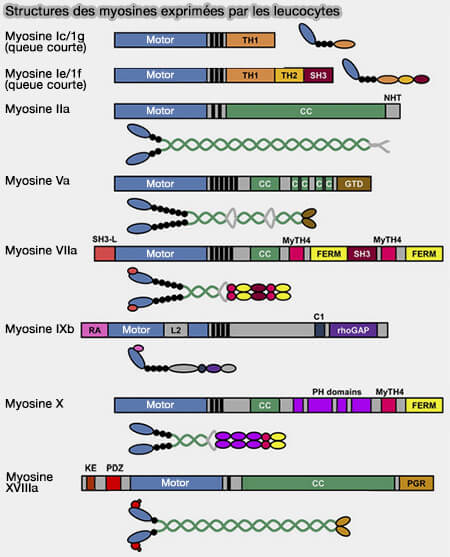
Structures des myosines exprimées par les leucocytes
(Figure : vetopsy.fr d'après Maravillas-Montero et coll) un domaine TH2, riche en proline, qui participe notamment aux interactions avec l'actine et d'autres partenaires,
un domaine SH3, qui est impliqué dans les interactions protéine/protéine.
4. Certaines myosines I, notamment Myo1b et Myo1c, présentent une forte mécanosensibilité.
Les forces mécaniques auxquelles elles sont soumises modifient la cinétique de leur cycle ATPasique et leur durée de liaison aux microfilaments d'actine.
a. Lorsque la charge mécanique qui s'oppose au mouvement est faible, la myosine poursuit son cycle ATPasique et se détache relativement rapidement de l'actine.
b. Lorsqu'une force résistante est exercée sur la myosine, par exemple lorsqu'une membrane à laquelle sa queue est liée s'oppose au déplacement du microfilament d'actine, certaines transitions du cycle sont ralenties et la tête reste fortement liée plus longtemps au microfilament d'actine.
Cet effet est particulièrement marqué pour Myo1b, dont le temps de liaison à l'actine augmente fortement sous une faible charge résistante.
La myosine peut alors maintenir la liaison entre le microfilament d'actine et la membrane et supporter la tension qui s'exerce entre eux, ce qui permet d'adapter localement les interactions membrane-cytosquelette aux forces mécaniques exercées sur la cellule.
c. Le maintien prolongé de la liaison actine-membrane lorsque la tension augmente permet à certaines myosines I de stabiliser temporairement les zones soumises à des forces mécaniques au cours de nombreux processus comme :
l'organisation et le positionnement de certains organites.
Autres myosines mécanosensibles
La mécanosensibilité n'est pas limitée aux myosines I et d'autres classes de myosines adaptent également leur comportement aux forces mécaniques auxquelles elles sont soumises.
1. Les myosines II modulent leur cinétique d'interaction avec l'actine et leur production de force en fonction de la charge.
Une charge résistante peut notamment ralentir certaines étapes du cycle mécanochimique et prolonger la liaison à l'actine, favorisant le maintien de la tension dans les muscles et les réseaux d'actomyosine des cellules non-musculaires.
Une charge résistante peut ralentir sa progression et prolonger sa liaison à l'actine, favorisant sa transition d'une fonction de transport vers une fonction d'ancrage capable de supporter une tension, notamment au niveau des membranes.


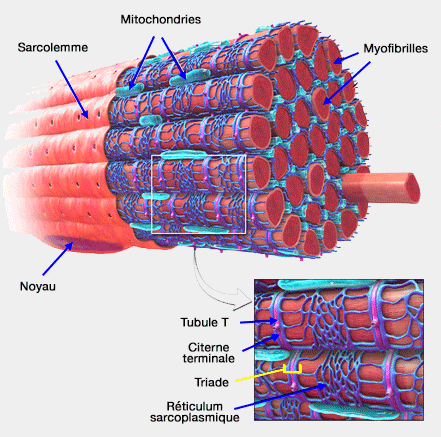

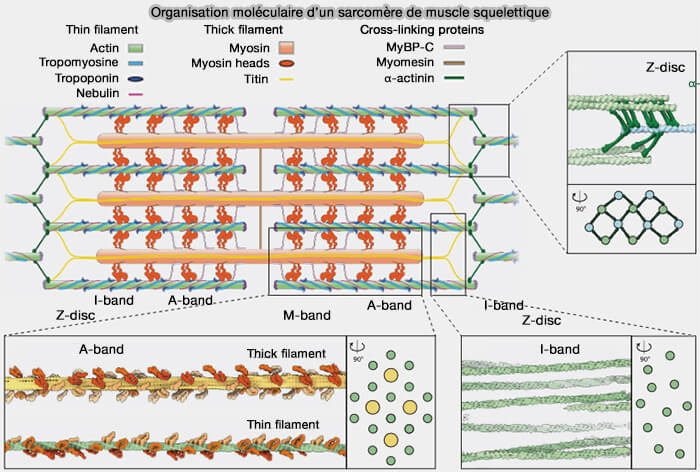
 contraction des muscles striés squelettiques)
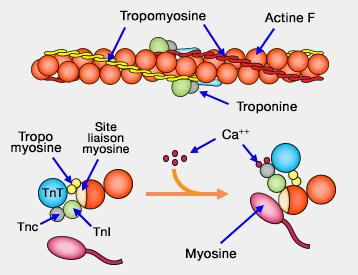
 cross-bridge dans la contraction musculaire).