• Comportement du chien et
    du chat
  • Celui qui connait vraiment les animaux est par là même capable de comprendre pleinement le caractère unique de l'homme
    • Konrad Lorenz
  • Biologie, neurosciences et
    sciences en général
  •  Le but des sciences n'est pas d'ouvrir une porte à la sagesse infinie,
    mais de poser une limite à l'erreur infinie
    • La vie de Galilée de Bertold Brecht

Neurophysiologie: : synapse chimique
Variations de structure
Jonction neuromusculaire

Sommaire
bien

Une jonction neuromusculaire (ou jonction myoneurale), synapse chimique entre un motoneurone et une fibre musculaire striée squelettique, permet au motoneurone de transmettre un signal conduisant à la contraction de la fibre musculaire.

Unité motrice

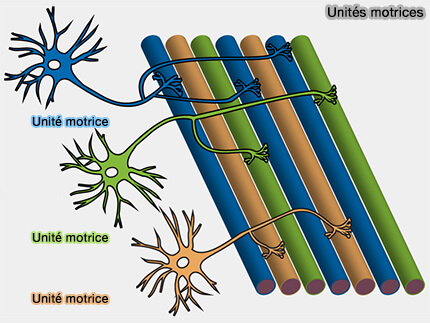
1. L'unité motrice est l'unité fonctionnelle élémentaire de la commande d'un muscle strié squelettique qui est formée par :

Remarque : les fibres extrafusales se distinguent des fibres intrafusales, fibres musculaires spécialisées des fuseaux neuromusculaires impliquées dans la proprioception, qui sont innervées par les motoneurones γ.

2. L'axone du motoneurone, lors de son arrivée dans le muscle, se ramifie en branches terminales qui établissent des jonctions neuromusculaires avec les différentes fibres musculaires de l'unité motrice (Distribution of motor unit properties across human muscles 2021).

  • Chaque branche terminale établit une jonction neuromusculaire avec une fibre musculaire, tandis qu'un même motoneurone peut ainsi innerver plusieurs fibres.
  • Le nombre de fibres musculaires innervées par un motoneurone varie considérablement selon les muscles et notamment selon la précision du contrôle moteur, de quelques fibres dans certaines petites unités motrices à plusieurs centaines dans les grandes unités motrices.
livre

Les fibres musculaires striées squelettiques extrafusales sont étudiées dans une page spécifique.

Structure de la jonction neuromusculaire

La jonction neuromusculaire, comme toutes les synapses, comporte :

Structure présynaptique

1. La terminaison axonale du motoneurone perd sa gaine de myéline à proximité de la fibre musculaire et se ramifie en boutons terminaux qui occupent des dépressions de sa surface.

Les boutons terminaux sont coiffés par des cellules de Schwann (neurolemmocytes) terminales, ou périsynaptiques, cellules gliales spécialisées qui participent au maintien et à la réparation de la jonction neuromusculaire.

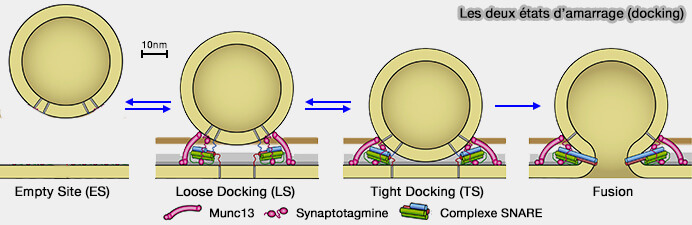
2. La membrane présynaptique comporte des zones actives, où sont concentrées les protéines impliquées dans l'amarrage, la fusion des vésicules synaptiques, permettant la libération du neurotransmetteur, l'acétylcholine (ACh).

Les deux états d'amarrage LS et DS
(Figure : vetopsy.fr d'après Neher et Brose)

3. Des canaux Ca2+ voltage-dépendants de type P/Q (CaV2.1) sont concentrés au niveau des zones actives et contrôlent la libération de l'ACh en réponse à l'arrivée du potentiel d'action.

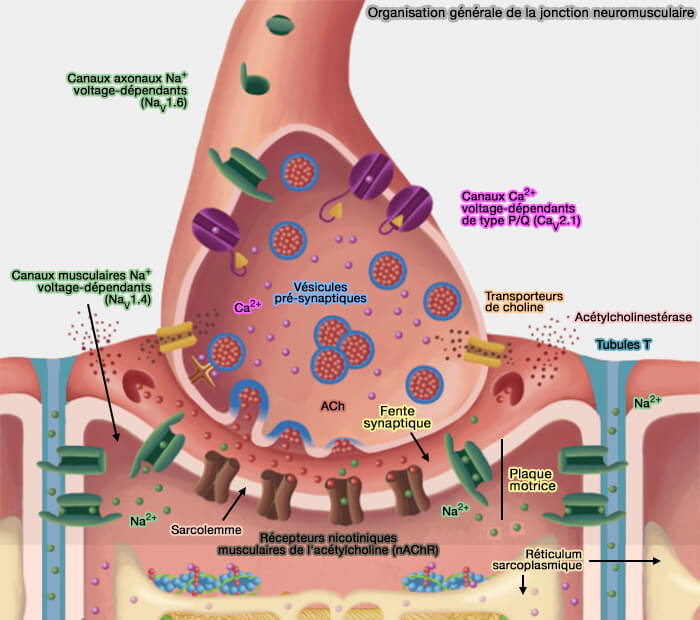
Organisation générale de la jonction neuromusculaire
(Figure vetopsy.fr adaptée d'après Brigham Young University-daho,
BIO 461 - Principles of Physiology, avec autorisation
)

Fente synaptique

La fente synaptique sépare la terminaison présynaptique du sarcolemme de la fibre musculaire striée et contient une lame basale synaptique spécialisée à la jonction neuromusculaire (Molecular control of neuromuscular junction development 2011).

Cette lame basale, continue avec les lames basales entourant la fibre musculaire et les cellules de Schwann, contient des protéines de la matrice extracellulaire, laminines, collagène IV, nidogènes et protéoglycanes à héparane sulfate comme le perlecan, ainsi que des protéines associées comme l'agrine, qui participent à l'organisation et à la stabilité de la jonction.

Signalisation agrine-LRP4-MuSK-rapsine et regroupement des nAChR

L'agrine, protéine sécrétée par la terminaison du motoneurone et incorporée à la lame basale synaptique, joue un rôle majeur dans l'organisation de la structure postsynaptique (The mechanisms of immunopathology underlying B cell depletion therapy- mediated remission and relapse in patients with MuSK MG 2023).

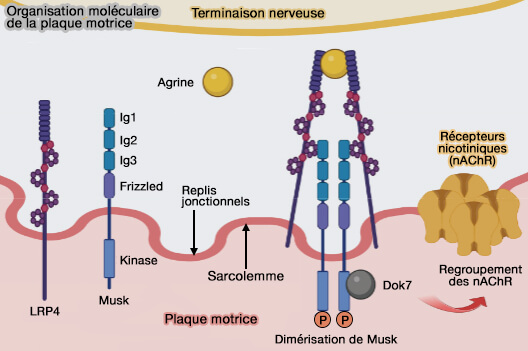
1. Elle se lie à LRP4 (low-density lipoprotein receptor-related protein 4), récepteur transmembranaire présent dans la membrane de la fibre musculaire.

Organisation moléculaire de la plaque motrice
(Figure vetopsy.fr d'après Oconnor et Fichter)
bien

Le rôle de LRP4 dans le développement et l'organisation des jonctions neuromusculaires est étudié plus en détail dans le chapitre consacré à LRP4.

2. La signalisation LRP4-MuSK recrute et active plusieurs protéines postsynaptiques (Structural insights into the assembly of the agrin/LRP4/MuSK signaling complex 2023) :

  • Dok7 (Docking protein 7), protéine adaptatrice cytoplasmique associée à MuSK, qui favorise sa dimérisation et renforce son activation,
  • la rapsyne, protéine d'échafaudage associée aux nAChR.
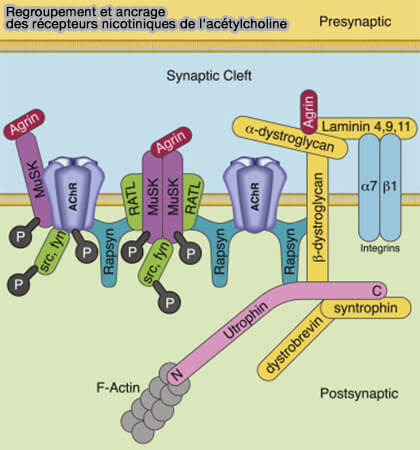
Regroupement et ancrage des nAChR
(Figure : vetopsy.fr d'après adaptée d'après
Waxham, 2014 ; Willmann & Fuhrer, 2002
)

a. La rapsyne se lie directement aux nAChR et s'associe à d'autres molécules de rapsyne, formant un échafaudage moléculaire qui favorise le regroupement des récepteurs en amas et leur maintien dans la membrane postsynaptique.

b. La stabilisation de ces amas fait également intervenir le complexe dystroglycane.

L'utrophine participe notamment à la liaison du complexe avec le cortex d'actine sous-membranaire.

c. Cet ensemble contribue ainsi à relier les complexes de nAChR à la matrice extracellulaire et au cytosquelette, renforçant leur concentration et leur stabilité au niveau de la plaque motrice.

3. La complexité du regroupement des AChR par la voie de signalisation de l'agrine peut être résumée dans cette figure non exhaustive tirée de : To build a synapse: signaling pathways in neuromuscular junction assembly (2010).

Complexité du regroupement des AChR par la voie de signalisation de l'agrine
(Figure : vetopsy.fr d'après Wu et coll)

Acétylcholinestérase et hydrolyse de l'acétylcholine

La lame basale contient également de l’acétylcholinestérase (AChE), enzyme qui hydrolyse rapidement l’acétylcholine (ACh) libérée dans la fente synaptique et contribue ainsi à l’arrêt de la transmission neuromusculaire.

Structure postsynaptique : plaque motrice

La structure postsynaptique de la jonction neuromusculaire forme une région spécialisée du sarcolemme appelée plaque motrice (Post-synaptic specialization of the neuromuscular junction: junctional folds formation, function, and disorders 2022).

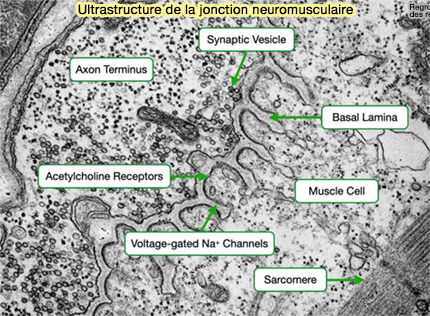
Ultrastructure de la jonction neuromusculaire
(Figure d'après Yale Team-Based Learning, MedCell)

1. Le sarcolemme de la plaque motrice forme de nombreux et profonds " replis jonctionnels ", qui augmentent la surface de la membrane postsynaptique.

Les récepteurs nicotiniques musculaires de l'acétylcholine (nAChR), regroupés et stabilisés notamment par la voie agrine-LRP4-MuSK-rapsyne, sont présents à très forte densité dans la partie supérieure des replis jonctionnels, en regard des zones actives de la membrane présynaptique (The mechanisms of immunopathology underlying B cell depletion therapy-mediated remission and relapse in patients with MuSK MG: Immune mechanisms of MuSK MG 2023).

2. Les canaux Na+ voltage-dépendants, en particulier les NaV1.4 sont principalement concentrés dans les régions plus profondes des replis jonctionnels et dans le sarcolemme périjonctionnel.

3. Cette organisation permet à l'activation des récepteurs nicotiniques par l'acétylcholine de déclencher, par l'intermédiaire des canaux Na+ voltage-dépendants, un potentiel d'action musculaire.

Fonctionnement de la jonction neuromusculaire

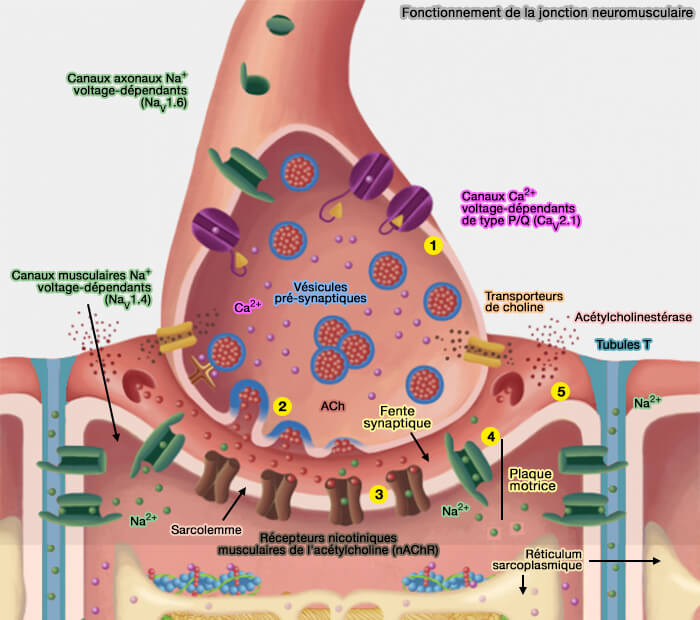
1. L'arrivée d'un potentiel d'action à la terminaison axonale du motoneurone α dépolarise la membrane présynaptique et provoque l'ouverture des canaux Ca2+ voltage-dépendants de type P/Q (CaV2.1) concentrés au niveau des zones actives.

2. L'entrée de Ca2+ dans la terminaison présynaptique déclenche la fusion des vésicules synaptiques avec la membrane présynaptique et la libération de l'acétylcholine (ACh) dans la fente synaptique par exocytose.

3. L'acétylcholine diffuse dans la fente synaptique et se fixe sur les récepteurs nicotiniques musculaires de l'acétylcholine (nAChR) concentrés dans la membrane de la plaque motrice (loupe regroupement des nAChR).

Leur ouverture permet principalement une entrée de Na+ accompagnée d'une sortie de K+.

bien

Le courant cationique net entrant qui en résulte produit une dépolarisation locale et graduée de la plaque motrice, appelée potentiel de plaque motrice.

Fonctionnement de la jonction neuromusculaire
(Figure vetopsy.fr adaptée d'après Brigham Young University-daho,
BIO 461 - Principles of Physiology, avec autorisation
)

4. Lorsque le potentiel de plaque motrice atteint le seuil d'activation des canaux Na+ voltage-dépendants, notamment NaV1.4, concentrés dans les régions profondes des replis jonctionnels et présents dans les tubules T, ceux-ci s'ouvrent à leur tour et provoquent une nouvelle entrée de Na+, responsable du déclenchement du potentiel d'action musculaire.

Le potentiel d'action se propage le long du sarcolemme et dans les tubules T.

bien

Le potentiel d'action constitue le signal électrique qui déclenchera le couplage excitation-contraction, étudié dans le chapitre consacré au muscle strié squelettique.

5. L'action de l'acétylcholine est rapidement interrompue par l’acétylcholinestérase (AChE) présente dans la lame basale de la fente synaptique.

  • L'AChE hydrolyse l'acétylcholine en acétate et choline.
  • La choline est récupérée par la terminaison présynaptique par des transporteurs de la choline et réutilisée pour la synthèse de nouvelles molécules d'acétylcholine.
conclusion

En conclusion, la transmission neuromusculaire suit la séquence :

potentiel d'action du motoneurone ➞ ouverture de CaV2.1 ➞ entrée de Ca2+ ➞ exocytose de l'ACh ➞ activation des nAChR ➞ potentiel de plaque motrice ➞ ouverture des canaux Na+ voltage-dépendants ➞ potentiel d'action musculaire ➞ propagation dans le sarcolemme et les tubules T ➞ couplage excitation-contraction.

Variations de l'innervation neuromusculaire

Les fibres musculaires striées squelettiques peuvent présenter différents modes d'innervation selon le nombre et la répartition de leurs jonctions neuromusculaires.

1. Les fibres musculaires striées squelettiques extrafusales des muscles " ordinaires " sont habituellement innervées par une seule jonction neuromusculaire et sont appelées fibres à innervation unique (Singly Innervated Fibres, SIF).

L'activation de leur jonction neuromusculaire déclenche un potentiel d'action musculaire propagé selon la loi du " tout ou rien ", qui entraîne une contraction brève de la fibre appelée secousse musculaire (twitch).

2. Cependant, certaines fibres de muscles spécialisés possèdent plusieurs jonctions neuromusculaires réparties le long de la fibre et sont appelées fibres à innervation multiple (Multiply Innervated Fibres, MIF).

Leurs contractions toniques sont activées localement au niveau des multiples jonctions neuromusculaires, sans déclencher de potentiel d'action musculaire propagé (nontwitch), et permettent une augmentation progressive de la tension musculaire.

  • Les muscles oculomoteurs constituent un exemple particulièrement bien caractérisé de cette organisation et comportent à la fois des SIF et des MIF (loupeinnervation des muscles oculaires).
  • Au cours du développement, la fibre musculaire est initialement polyinnervée par plusieurs motoneurones et une compétition synaptique entraîne progressivement l'élimination des connexions surnuméraires et conduit à la monoinnervation caractéristique de la plupart des fibres musculaires adultes.

Jonction neuromusculaire et muscle strié squelettique

Le potentiel d'action musculaire déclenché au niveau de la jonction neuromusculaire se propage le long du sarcolemme et dans les tubules T.

bien

Son rôle dans le couplage excitation-contraction et le déclenchement de la contraction est étudié dans le chapitre consacré au muscle strié squelettique.