


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Protéines de nucléation
Formines : mécanisme d'action et fonctions biologiques
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

Les formines assurent la nucléation et l'élongation processive des microfilaments d'actine linéaires grâce à un mécanisme original faisant intervenir les domaines FH1 et FH2 et participent à de nombreuses fonctions cellulaires.

(Figure : vetopsy.fr)
Les protéines de nucléation constituent une famille de protéines de liaison à l'actine (ABP ou Actin Binding Proteins) qui initient la polymérisation des microfilaments d'actine en stabilisant les premiers monomères d'actine G nécessaires à la formation d'un noyau de polymérisation ( vue d'ensemble des protéines de nucléation).
Les formines représentent l'une des trois grandes familles de protéines de nucléation.

La classification, la structure et les principaux partenaires moléculaires des formines sont étudiés dans une page spécifique.
La nucléation et l'élongation des microfilaments d'actine reposent sur une coopération étroite entre les formines et la profiline.
Cette dernière recrute les monomères d'actine G-ATP et les délivre au domaine FH2 de la formine, qui les incorpore à l'extrémité barbée (+) du microfilament.
Assemblage des microfilaments d'actine par les formines
L'assemblage des microfilaments d'actine par les formines comporte plusieurs étapes (Mechanisms of formin-mediated actin assembly and dynamics 2018 et Unleashing formins to remodel the actin and microtubule cytoskeletons 2010).
(Vidéo : Mecanobiology institute de Singapour institute of Health)
1. Les GEF (Guanine nucleotide exchange factor) activent les petites GTPases de la famille Rho en favorisant l'échange du GDP contre du GTP, conduisant à la formation de Rho-GTP.
La formine est alors encore sous sa forme autoinhibée, maintenue par l'interaction entre les domaines DID et DAD.
2. La fixation de Rho-GTP sur le domaine GBD (GTPase-Binding Domain) provoque une modification conformationnelle qui rompt l'interaction entre les domaines DID et DAD.
La formine se déplie alors, exposant les domaines FH1 et FH2.
Vous pouvez suivre le processus dans : A structural model of the profilin–formin pacemaker system for actin filament elongation (2022).
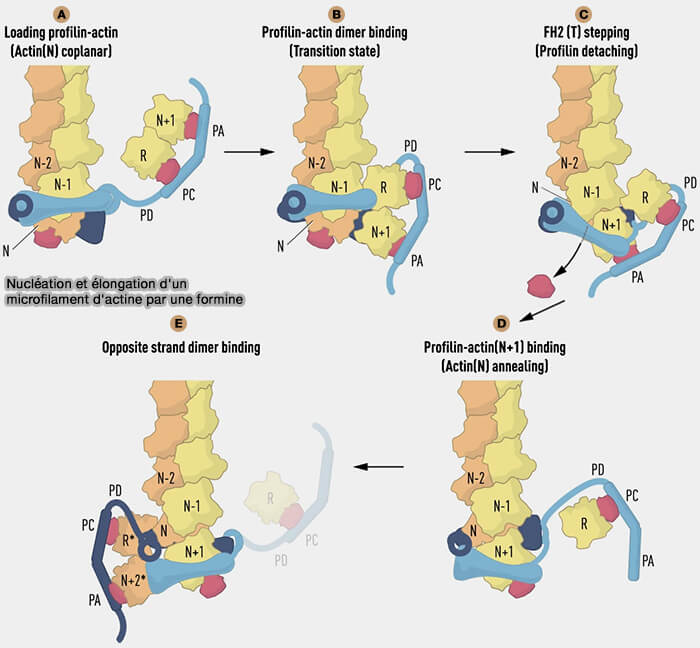
3. Le dimère de formines devient fonctionnel après son activation en se plaçant tête-bêche et en fixant deux sous-unités d'actine (figure A) (Structural model of the profilin–formin pacemaker system for actin filament elongation 2022).
a. La liaison avec l'actine se ferait par les sous-domaines knob, coiled-coil, et le lasso/post de FH2.
L'hélice D du sous-domaine knob, à ne pas confondre avec la la boucle D (DNase I-binding loop) de l'actine, se loge dans le sillon hydrophobe au niveau de l'extrémité barbée (+).
b. Cette organisation maintient l'extrémité barbée (+) accessible au domaine FH2, permettant l'incorporation successive de nouveaux monomères d'actine G
(Figure : vetopsy.fr d'après Schutt et coll)
4. Le domaine FH1 fixe les complexes profiline-actine G-ATP grâce à ses régions riches en proline (The Role of the FH1 Domain and Profilin in Formin-Mediated Actin-Filament Elongation and Nucleation 2008), ce qui augmente fortement la vitesse d'élongation du microfilament (figure B).
a. Il les transmet au domaine FH2 qui les incorpore aux microfilaments d'actine (figure C et D)
- La libération conjointe de la profiline permet son association avec des monomères d'actine G-ADP, dont elle favorise l'échange de l'ADP contre un ATP.
- Les complexes profiline–actine G-ATP ainsi formés peuvent alors participer à un nouveau cycle de polymérisation, contribuant à l'allongement du microfilament.
b. Comme l'actine F est constituée de deux brins hélicoïdaux, le dimère FH2 reste associé à l'extrémité barbée (+) et progresse de manière processive par un mouvement alterné de ses deux sous-unités ( Mechanism and Function of Formins in the Control of Actin Assembly).
- Ce mécanisme permet l'incorporation successive de nouveaux monomères d'actine G et l'allongement continu du microfilament (figure D et E)
- En restant associée à l'extrémité barbée (+), la formine limite également la fixation des protéines de coiffe, notamment CapZ, favorisant ainsi la poursuite de l'élongation du microfilament.
5. À la fin du processus, les protéines GAP (GTPase-Activating Protein ou GTPase-Accelerating Protein) stimulent l'hydrolyse du GTP en GDP, entraînant l'inactivation de Rho.
Les GDI (guanosine nucleotide dissociation inhibitor) séquestrent ensuite Rho-GDP dans le cytosol, empêchant sa réactivation spontanée.
6. À terme, une protéine de coiffe peut remplacer la formine à l'extrémité barbée (+), interrompant l'élongation du microfilament.
La formine retrouve alors sa conformation autoinhibée et peut participer à un nouveau cycle d'assemblage.
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation