


Protéines
Chaperonnes moléculaires
Vue d'ensemble et
Hsp70
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

Les chaperonnes moléculaires participent au repliement et au contrôle qualité des protéines, notamment grâce au système Hsp70 et à ses cochaperonnes JDP, Hsp110 et autres facteurs d'échange nucléotidique.
Vue d'ensemble des chaperonnes moléculaires
1. Les chaperonnes moléculaires constituent plusieurs familles qui diffèrent par leur structure, leur mécanisme d'action, les protéines qu'elles prennent en charge et leur localisation cellulaire :
- l'acquisition ou le maintien d'une conformation correcte,
- la limitation des interactions inappropriées entre chaînes polypeptidiques,
- la prévention de leur agrégation.
Elles participent ainsi au maintien de la protéostasie, aussi bien au cours de la synthèse et de la maturation normales des protéines qu'en réponse à différents stress susceptibles d'altérer leur conformation.
Les chaperonnes moléculaires constituent plusieurs familles qui diffèrent par leur structure, leur mécanisme d'action, leurs protéines prises en charge et leur localisation cellulaire.
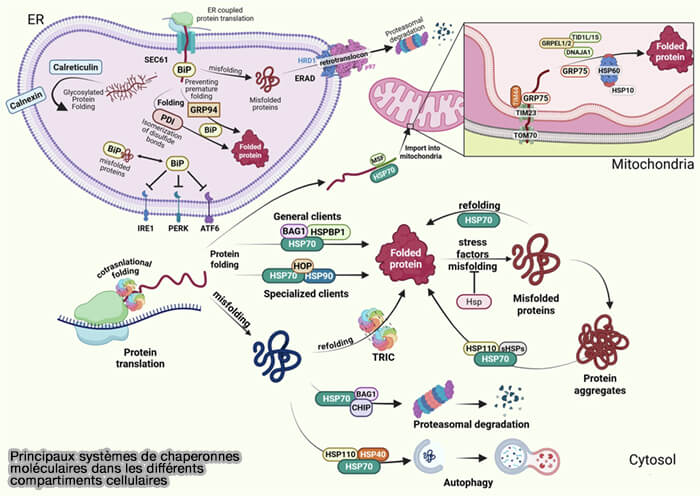
(Figure : vetopsy.fr d'après Kuzu et coll)
2. De nombreuses chaperonnes appartiennent aux protéines de choc thermique (Hsp ou Heat-Shock Protein), initialement identifiées en raison de l'augmentation de leur expression en réponse à un choc thermique.
a. Certaines Hsp sont fortement inductibles lors d'un stress cellulaire, tandis que d'autres sont exprimées de manière constitutive et participent en permanence au fonctionnement et au contrôle qualité des protéines.
b. Les principales protéines de choc thermique impliquées dans les systèmes de chaperonnes comprennent notamment :
- les Hsp70, principales chaperonnes impliquées dans la prise en charge de nombreuses protéines au cours de leur repliement et de leur contrôle qualité,
- les Hsp90, qui participent notamment à la maturation et à la stabilisation de nombreuses protéines clientes, en particulier des protéines impliquées dans la signalisation cellulaire,
- les Hsp110, apparentées aux Hsp70 et qui fonctionnent notamment comme cochaperonnes de celles-ci et participent à la désagrégation des protéines,
- les Hsp60, qui appartiennent aux chaperonines et forment notamment avec Hsp10 le système chaperonine mitochondrial,
- les petites Hsp (sHsp), qui contribuent notamment à prévenir l'agrégation des protéines.
3. D'autres systèmes de chaperonnes et de cochaperonnes n'appartiennent pas aux principales familles de Hsp décrites précédemment, notamment :
- les protéines à domaine J (JDP), historiquement souvent désignées sous le nom de Hsp40, qui agissent principalement comme cochaperonnes des Hsp70,
- les chaperonines cytosoliques eucaryotes TRiC/CCT, qui forment une chambre de repliement pour certaines protéines,
- la préfoldine, qui coopère notamment avec TRiC/CCT dans le repliement de certaines protéines comme l'actine et les tubulines.
Remarque : le complexe NAC (Nascent Polypeptide-Associated Complex) s'associe aux chaînes polypeptidiques naissantes à la sortie du ribosome et contribue à contrôler leurs interactions précoces au cours de leur synthèse.
4. Ces différents systèmes peuvent agir successivement ou coopérer au sein de réseaux de chaperonnes qui accompagnent les protéines depuis leur synthèse jusqu'à l'acquisition et au maintien de leur conformation fonctionnelle, et contribuent à leur contrôle qualité lorsqu'un repliement correct ne peut être obtenu ou restauré.
Famille Hsp70
1. Les Hsp70 constituent une famille très conservée de chaperonnes moléculaires qui participent :
- au repliement des protéines nouvellement synthétisées,
- au maintien de leur conformation,
- à la prise en charge des protéines mal repliées ou endommagées.
a. Leur activité repose sur un cycle dépendant de l'ATP, contrôlé par des cochaperonnes, principalement les protéines à domaine J (JDP) et les facteurs d'échange de nucléotides (NEF).
b. Chez les mammifères, la famille comprend :
- des Hsp70 cytosoliques inductibles en réponse au stress, notamment Hsp70/HSPA1A et HSPA1B, qui contribuent à la protection des protéines lors des stress cellulaires,
- Hsc70/HSPA8, principalement constitutive et cytosolique, impliquée notamment dans le repliement des protéines et le déshabillage des vésicules de clathrine,
- BiP/GRP78/HSPA5, localisée dans la lumière du réticulum endoplasmique, où elle participe au repliement et au contrôle qualité des protéines de la voie sécrétoire,
- mtHsp70/HSPA9, principalement localisée dans la matrice mitochondriale, où elle participe à l'importation et au repliement des protéines mitochondriales.
2. Malgré leurs localisations et leurs fonctions spécialisées, ces Hsp70 partagent une organisation structurale et un mécanisme général communs.
Structure des Hsp70
Les protéines de la famille Hsp70 possèdent une organisation structurale très conservée comprenant deux domaines principaux reliés par un linker interdomaines.

La structure détaillée des différents domaines est décrite pour Hsc70/HSPA8, membre constitutif de la famille Hsp70.
1. Le domaine N-terminal de liaison aux nucléotides (NBD : Nucleotide Binding Domain) possède une activité ATPase et comprend quatre sous-domaines (IA, IB, IIA et IIB), organisés en deux lobes entre lesquels se trouve la fente de liaison aux nucléotides.
2. Le domaine de liaison au substrat (SBD : Substrate Binding Domain) comprend :
- un sous-domaine en sandwich β (SBDβ), qui assure la liaison de courts segments peptidiques généralement enrichis en résidus hydrophobes,
- un sous-domaine α-hélicoïdal (SBDα) C-terminal, qui forme un " couvercle " contrôlant l'accès du substrat à la fente de liaison et sa rétention.
3. Le linker interdomaines participe au couplage allostérique entre le NBD et le SBD, qui permet au cycle ATPasique de contrôler la liaison et la libération des protéines substrats.
Mécanisme d'action des Hsp70
L'activité de chaperonne des Hsp70 repose sur un cycle ATPasique qui contrôle alternativement la liaison et la libération des protéines substrats.
Ce mécanisme dépend d'un couplage allostérique entre le NBD et le SBD, modulé par la fixation et l'hydrolyse de l'ATP et régulé par différentes cochaperonnes.
Couplage allostérique entre le NBD et le SBD
1. Le linker interdomaines flexible reliant le NBD (Nucleotide Binding Domain) au SBD (Substrate Binding Domain) permet des mouvements importants de ces deux domaines l'un par rapport à l'autre, leurs orientations relatives pouvant notamment varier dans un cône d'environ ±35° dans l'état lié à l'ADP (Solution conformation of wild-type E. coli Hsp70 (DnaK) chaperone complexed with ADP and substrate 2009).
a. Bien que les fonctions de liaison du NBD et du SBD soient distinctes, l'activité de chaperonne des Hsp70 dépend étroitement du couplage allostérique entre ces deux domaines (Hsp70 chaperone dynamics and molecular mechanism 2013).
- La liaison de l'ATP au NBD induit des changements conformationnels transmis au SBD qui entraînent l'ouverture du SBDα et diminuent fortement l'affinité pour les protéines substrats en accélérant notamment leur dissociation.
- Réciproquement, la liaison d'une protéine substrat au SBD stimule l'hydrolyse de l'ATP par le NBD.
b. Grâce à ce couplage, l'énergie de l'hydrolyse de l'ATP est efficacement utilisée pour la régulation de la liaison et de la libération du peptide du substrat, i.e. le chaperon est efficace.
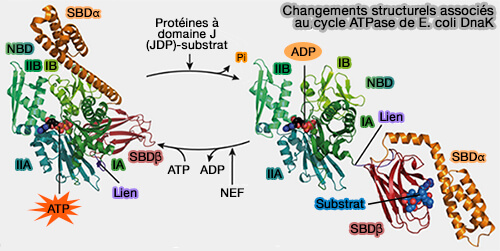
(Figure : vetopsy.fr d'après Kityk et coll)
2. Grâce à ce couplage bidirectionnel, le cycle ATPasique du NBD contrôle ainsi la liaison et la libération des protéines substrats par le SBD, tandis que la liaison du substrat module en retour l'activité ATPase du NBD.
Cycle canonique des Hsp70
Le cycle des Hsp70 repose sur l'alternance entre :
- un état lié à l'ATP, ouvert et de faible affinité pour les protéines substrats,
- un état lié à l'ADP, fermé et de forte affinité.
Les protéines à domaine J (JDP) et les facteurs d'échange de nucléotides (NEF) contrôlent les principales transitions entre ces deux états (Étude de l’expression du stress du réticulum endoplasmique au cours de l’inflammation systémique aiguë chez l’homme 2021).

(Figure : vetopsy.fr d'après Kampiga et coll)
1. Une protéine à domaine J (JDP) se lie à une protéine substrat non repliée ou mal repliée présentant des régions exposées susceptibles d'être prises en charge par Hsp70.
2. La JDP favorise le recrutement de Hsp70 liée à l'ATP et la prise en charge de la protéine substrat par le SBD.
- Dans l'état lié à l'ATP, le linker interdomaines est inséré dans une fente du NBD et le SBDβ est ancré au NBD, tandis que le couvercle α-hélicoïdal SBDα est ouvert.
- Le SBD présente alors une faible affinité pour le substrat et des vitesses rapides de liaison et de dissociation.
3. La JDP, en synergie avec le substrat, stimule l'hydrolyse de l'ATP en ADP, ce qui entraîne un resserrement conformationnel de Hsp70 autour du substrat avec dissociation du SBD et du NBD et fermeture du SBDα sur le substrat, qui est alors maintenu avec une forte affinité.
- La liaison du substrat, en synergie avec l'action de la JDP, stimule l'activité ATPase de Hsp70 par une voie allostérique transmise du SBD au NBD et favorise la fermeture du SBDα, la dissociation du SBDβ du NBD et les réarrangements des lobes du NBD nécessaires à une hydrolyse efficace de l'ATP.
- Dans l'état lié à l'ADP, Hsp70 adopte majoritairement une conformation fermée de forte affinité pour le substrat, tout en pouvant explorer transitoirement des conformations plus ouvertes.
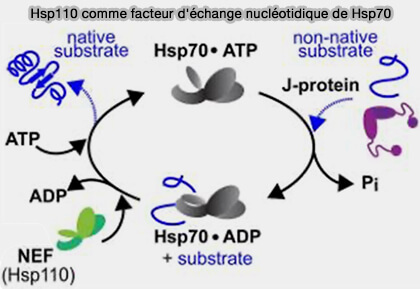
4. Un facteur d'échange de nucléotides (NEF) est recruté et se lie au NBD et favorise la dissociation de l'ADP.
5. L’ADP est dissocié.
6. Une nouvelle molécule d'ATP se fixe au NBD, provoquant successivement :
- la rotation des lobes du NBD l'un vers l'autre,
- l'ouverture de la fente inférieure du NBD,
- l'insertion du linker interdomaines et l'ancrage du SBDβ au NBD,
- l'ouverture du couvercle α-hélicoïdal SBDα,
- la diminution de l'affinité du SBD pour la protéine substrat.
7. Le complexe Hsp70-substrat–NEF se dissocie, provoquant la libération de la protéine qui peut poursuivre son repliement et atteindre sa conformation native.
Lorsque le repliement correct n'est pas atteint, la protéine peut être prise en charge au cours d'un nouveau cycle Hsp70 ou, si le mauvais repliement persiste, être orientée vers les systèmes de dégradation des protéines.
Cochaperonnes du système Hsp70
Protéines à domaine J (JDP ou J-domain proteins)
Les protéines à domaine J (JDP ou J-domain proteins), historiquement appelées Hsp40, constituent une famille très diversifiée de cochaperonnes des Hsp70.
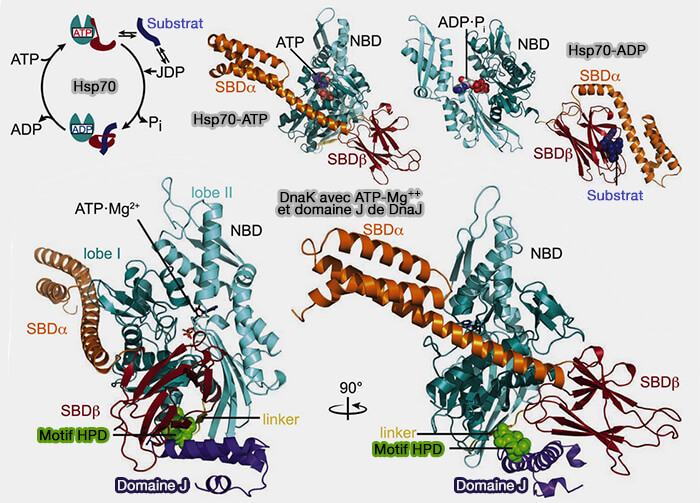
(Figure : vetopsy.fr d'après Kityk et coll)
1. Elles reconnaissent et recrutent différents substrats protéiques grâce à des domaines variables selon les JDP et les présentent aux Hsp70, contribuant ainsi à déterminer la spécificité fonctionnelle du système Hsp70.
a. Leur domaine J conservé interagit avec le NBD des Hsp70 et stimule leur activité ATPasique, favorisant ainsi l'hydrolyse de l'ATP et la stabilisation de la liaison du substrat dans le SBD ( domaine J).
b. HIP (Hsp70-interacting protein ou ST13) peut ensuite interagir avec le domaine de liaison aux nucléotides de Hsp70/Hsc70 et stabiliser son état lié à l'ADP, prolongeant ainsi la liaison de la protéine cliente à Hsp70.
Cette étape peut notamment précéder le transfert de certaines protéines clientes du système Hsp70 vers Hsp90 grâce à l'intervention de la cochaperonne HOP/STIP1 (cycle fonctionnel et cochaperonnes de Hsp90).
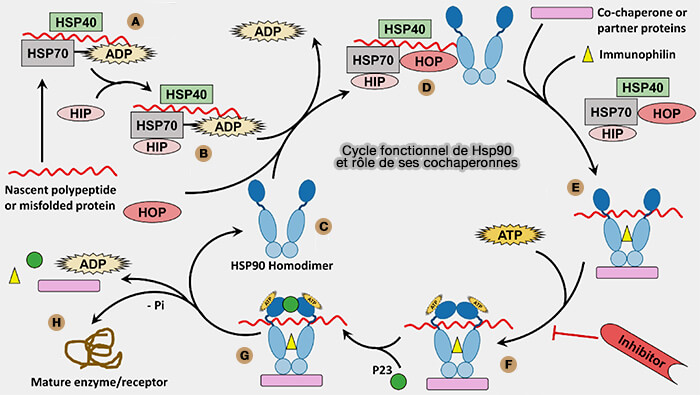
(Figure : vetopsy.fr d'après Abdullah et coll)
2. Les JDP sont traditionnellement réparties en trois classes selon leur organisation structurale.
- les JDP de classe A possèdent un domaine J N-terminal, une région riche en Gly/Phe, une région riche en Cys liant le zinc et un domaine C-terminal de liaison aux substrats,
- les JDP de classe B présentent une organisation voisine mais sont dépourvues de la région riche en Cys liant le zinc,
- les JDP de classe C forment un groupe beaucoup plus hétérogène dans lequel le domaine J peut occuper différentes positions et être associé à des domaines variés, souvent adaptés à des fonctions spécialisées.
3. La grande diversité des JDP, leur localisation dans différents compartiments cellulaires et leurs interactions avec des ensembles distincts de substrats permettent à un nombre relativement limité de Hsp70 d'intervenir dans de nombreux processus cellulaires :
- le repliement des protéines nouvellement synthétisées,
- la prévention de leur agrégation,
- la désagrégation des protéines,
- le contrôle qualité des protéines,
- certains processus spécialisés comme le déshabillage des vésicules recouvertes de clathrine par l'auxiline et GAK.
Facteurs d'échange nucléotidique (NEF)
1. Les facteurs d'échange de nucléotides (NEF ou nucleotide exchange factors) sont des cochaperonnes des Hsp70 qui favorisent la dissociation de l'ADP du NBD.
- La fixation d'une nouvelle molécule d'ATP entraîne alors le retour de Hsp70 à un état de faible affinité pour le substrat, l'ouverture du SBD et la libération de celui-ci.
- Leur fonction est analogue à celle GEF (Guanine nucleotide exchange factor),
(Figure : vetopsy.fr d'après Nillegoda et Bukau)
2. Chez les mammifères, plusieurs familles de protéines possèdent une activité NEF vis-à-vis des Hsp70.
- Hsp110 (Heat shock protein 110), une cochaperonne des Hsp70, possède également une activité propre de chaperonne et sera développée ci-dessous,
- HspBP1 (Hsp70-binding protein 1), une cochaperonne qui se lie au NBD des Hsp70, favorise la dissociation de l'ADP.
- Les protéines BAG (Bcl-2-associated athanogene) possèdent un domaine BAG capable de se lier au NBD des Hsp70 et de favoriser l'échange nucléotidique (BAG2 structure, function and involvement in disease 2016).
Elles constituent une famille de cochaperonnes aux fonctions diversifiées, impliquées notamment dans le repliement, le contrôle qualité et l'orientation des protéines vers différentes voies de dégradation.
3. D'autres NEF sont associés à des Hsp70 particulières ou à certains compartiments cellulaires, notamment Sil1 et Grp170 dans le réticulum endoplasmique, où ils régulent le cycle de BiP et participent ainsi au repliement et au contrôle qualité des protéines de la voie sécrétoire.
Hsp110 et désagrégation des protéines
Les protéines Hsp110 constituent une famille de chaperonnes moléculaires apparentées aux Hsp70, avec lesquelles elles partagent une organisation générale comprenant un domaine N-terminal de liaison aux nucléotides (NBD) et un domaine de liaison aux substrats (SBD).
Elles possèdent deux propriétés complémentaires (Metazoan Hsp70-based protein disaggregases: emergence and mechanisms 2015).
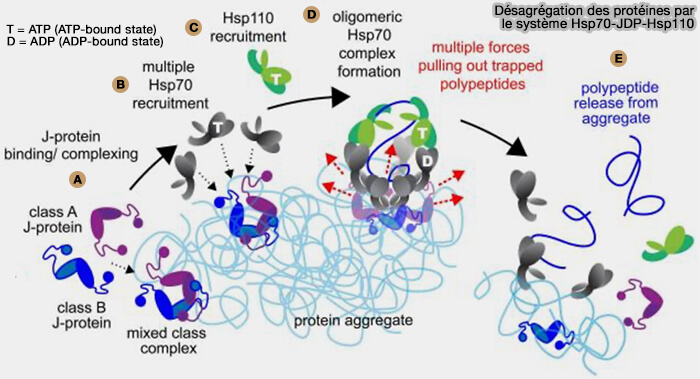
1. Comme cochaperonnes des Hsp70, elle interviennent dans le système Hsp70-JDP-Hsp110 qui constitue le principal système de désagrégation des protéines du cytosol des cellules animales et participe au maintien de la protéostasie.
a. Lors de l'accumulation de protéines mal repliées ou agrégées, le système Hsp70-JDP-Hsp110 permet leur désagrégation selon plusieurs étapes (contrôle de qualité des protéines) :
- A. Les JDP reconnaissent les protéines agrégées et se fixent à leur surface.
- B. Elles recrutent localement plusieurs molécules de Hsp70, qui s'accumulent à la surface de l'agrégat.
- C. Hsp110 est recrutée au niveau de ces complexes Hsp70-JDP.
- D. L'action coordonnée des JDP, de plusieurs molécules de Hsp70 et de Hsp110 favorise l'extraction progressive de chaînes polypeptidiques de l'agrégat.
- E. L'activité NEF de Hsp110 favorise l'échange de l'ADP contre de l'ATP sur Hsp70, entraînant la dissociation de Hsp70 des chaînes polypeptidiques extraites et permettant le renouvellement du cycle.
(Figure : vetopsy.fr d'après Nillegoda et Bukau)
b. Les protéines ainsi solubilisées peuvent ensuite être repliées avec l'aide des chaperonnes moléculaires, notamment Hsp70 et Hsp90, ou, lorsqu'elles ne peuvent retrouver une conformation correcte, être orientées vers les systèmes de dégradation.
2. Comme chaperonnes, les Hsp110 peuvent également se lier directement à des protéines dépliées ou mal repliées et limiter leur agrégation.
Cette activité contribue, avec leur fonction de NEF des Hsp70, au maintien des protéines sous une forme soluble et à leur prise en charge ultérieure pour leur repliement ou leur dégradation.